Parte XI · Lo vivo que observo
Ecosistemas
Se construye sobre: Fotosíntesis, Energía
Imagina un tronco caído en un bosque de niebla. Por fuera tiene musgo y helechos pequeños. Si lo tocas, cede: por dentro está blando, lleno de hilos blancos de hongo, de larvas de escarabajo, de lombrices. Un pájaro carpintero lo golpea buscando larvas. En unos años no va a quedar tronco, y en su lugar habrá suelo oscuro del que crecerán otras plantas. ¿Para dónde se fue la madera?
La respuesta tiene dos mitades que se comportan al revés. Lo que había de materia en ese tronco (carbono, nitrógeno, fósforo, agua) no desaparece: vuelve al aire y al suelo y otra planta lo vuelve a usar. Lo que había de energía sí se va, poco a poco, convertida en calor. Un ecosistema es la red donde ocurren las dos cosas a la vez: la materia da vueltas y la energía pasa de largo.
Quién produce, quién consume, quién recicla
Casi toda la energía que mueve la vida en la Tierra entra por la fotosíntesis: plantas, algas y cianobacterias toman luz, agua y dióxido de carbono y fabrican azúcares. Son los productores. (Hay excepciones hermosas: en las fuentes hidrotermales del fondo del mar, donde no llega la luz, hay bacterias y arqueas que obtienen energía oxidando compuestos químicos que salen de la roca; eso se llama quimiosíntesis.)
Todo lo demás vive, directa o indirectamente, de lo que fabrican los productores. Los consumidores se comen esa materia: los herbívoros, a las plantas; los carnívoros, a los herbívoros; y muchos, como nosotros, un poco de todo. Y al final están los descomponedores, que se alimentan de lo muerto: bacterias, lombrices, insectos y, sobre todo en tierra firme, los hongos. La madera es difícil de digerir porque la lignina que la endurece es un material muy resistente, y los organismos más eficaces descomponiéndola son ciertos hongos. Sin descomponedores, el bosque se llenaría de troncos y hojas muertas, y los nutrientes quedarían encerrados en ellos.
La lista “quién se come a quién” se suele dibujar como una cadena trófica: planta, oruga, pájaro, gavilán. Cada eslabón es un nivel trófico. En la realidad casi nunca es una cadena, sino una red: el pájaro come orugas y semillas, al gavilán se le escapan pájaros pero caza ratones, los hongos reciclan a todos. Las redes reales tienen cientos de nodos, y su forma importa: una especie que conecta muchos caminos no pesa lo mismo que una que está en una sola punta.
La energía fluye y se degrada
Lo primero que la red le debe a la física es la conservación de la energía: cada julio que llega a un nivel trófico sale de él por algún lado. Lo segundo, la segunda ley: en cada transformación, una parte se vuelve calor y ya no sirve para hacer otra cosa. Una oruga que se come una hoja no convierte toda esa hoja en oruga. Una parte no la digiere y la expulsa; otra la quema para vivir, en la misma respiración celular que cuenta el metabolismo, y la devuelve como calor; solo una fracción queda en su cuerpo, disponible para el pájaro que se la coma.
Esa fracción, la eficiencia de un nivel al siguiente, se resume con una regla aproximada que se volvió famosa: alrededor del 10 %. Es una aproximación de órdenes de magnitud; en la realidad varía, típicamente entre unos pocos por ciento y un veinte por ciento, según el ecosistema y los animales (los de sangre caliente gastan mucho en calentarse). Pero basta para ver la consecuencia. Si al nivel de las plantas entran julios, al nivel llegan más o menos
Con diez mil julios en las plantas, mil llegan a los herbívoros, cien a los que se comen a los herbívoros y diez al siguiente nivel. Por eso la energía se dibuja como una pirámide; por eso las cadenas rara vez pasan de cuatro o cinco eslabones (arriba no queda con qué vivir); y por eso los grandes depredadores son pocos y necesitan territorios enormes. Si sumas que, como cuenta el capítulo de energía, un cultivo guarda en azúcares apenas uno o dos de cada cien julios de luz que recibe, el gavilán está viviendo de una fracción diminuta del sol que cayó sobre el bosque.
La materia da vueltas
Con la materia pasa lo contrario. La Tierra, en la práctica, no recibe ni pierde materia de manera importante; recibe y devuelve energía. Así que los átomos que usa la vida tienen que circular. Para los ecólogos, un ecosistema funciona como un conjunto de ciclosmovidos por ese flujo de energía, la misma idea de qué es la vida a escala de bosque: orden que se mantiene gracias a una corriente que entra y sale.
El ciclo del carbono es el más fácil de ver. Las plantas sacan CO₂ del aire y lo convierten en azúcares, celulosa y madera. Los animales y los descomponedores, al respirar, devuelven ese carbono como CO₂. Una parte se disuelve en el mar; otra queda enterrada durante millones de años, y así se formaron el carbón y el petróleo. Al quemarlos devolvemos al aire, en décadas, carbono que tardó edades geológicas en guardarse, y por eso la concentración de CO₂ en la atmósfera sube.
El ciclo del nitrógeno es más sutil. El aire es casi un 78 % nitrógeno, pero en forma de N₂, dos átomos unidos por un triple enlace que casi ningún ser vivo puede romper (ese enlace se entiende con la tabla periódica). Y todas las proteínas y el ADN necesitan nitrógeno. Lo que lo hace entrar a la vida son ciertas bacterias “fijadoras”, algunas de las cuales viven en nódulos de las raíces de las leguminosas, como el fríjol, que les dan azúcares a cambio (sobre raíces y lo que hacen, cómo está hecha una planta). Otras bacterias hacen el camino inverso y lo devuelven al aire como N₂. Desde el siglo XX, además, la industria fija nitrógeno con el proceso de Haber–Bosch para hacer fertilizantes, y hoy una parte muy grande del nitrógeno de nuestra comida pasó por ahí.
Y el ciclo del agua también tiene una parte viva: las plantas sacan agua del suelo y la sueltan por las hojas, de modo que sobre un bosque una parte importante de la humedad del aire salió de los árboles. El tronco del principio entra en los tres ciclos. Su carbono vuelve al aire por la respiración de los hongos; su nitrógeno queda en el suelo, donde lo toman otras raíces; su agua se evapora. Nada se perdió, salvo la energía.
Especies clave
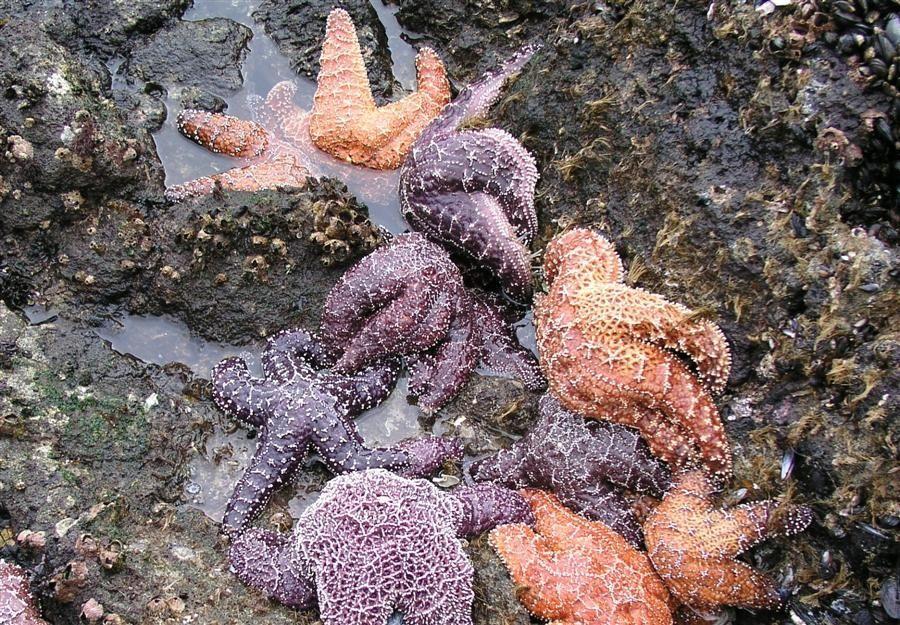
En una red, no todos los nodos valen lo mismo. En los años sesenta, el ecólogo Robert Paine retiró durante años las estrellas de mar depredadoras de un tramo de costa rocosa en el noroeste de Estados Unidos y dejó otro tramo intacto como comparación. Donde no había estrellas, los mejillones, que eran su presa favorita, se apoderaron de la roca y desplazaron a muchas otras especies; la diversidad del tramo cayó. Paine llamó a ese depredador una especie clave, como la piedra central de un arco: su efecto es mucho mayor que su abundancia. Otro ejemplo clásico es el de las nutrias marinas, que comen erizos; donde las nutrias desaparecen, los erizos se multiplican y arrasan los bosques de algas. Los efectos en cascada de un depredador tope son reales, aunque en muchos casos famosos su tamaño se sigue discutiendo.
Presas y depredadores, en ecuaciones
Hacia mediados de los años veinte, Alfred Lotka y Vito Volterra, por separado, escribieron el modelo más simple de una presa y su depredador. La historia que se cuenta de Volterra es que se interesó por el problema a través de su yerno, el biólogo Umberto D’Ancona, quien había notado en registros de pesca del Adriático que la fracción de peces depredadores había subido en los años de la Primera Guerra Mundial, cuando se pescó menos.
Sean las presas y los depredadores. El modelo habla de sus tasas de cambio, es decir, de sus derivadas:
Cada término se lee en voz alta. Sin depredadores, las presas crecen en proporción a cuántas hay (, crecimiento exponencial). Los encuentros entre presas y depredadores son proporcionales al producto , y cada encuentro le quita a las presas () y, en otra proporción, alimenta a los depredadores (). Sin comida, los depredadores mueren a tasa constante (). El equilibrio, donde las dos derivadas son cero, está en
Fíjate en algo que no es intuitivo: el número de presas en el equilibrio depende solo de las tasas de los depredadores, y el de depredadores, solo de las de las presas. Si las presas se reproducen más rápido, lo que aumenta en promedio no son las presas, sino los depredadores. De ahí sale también la observación de D’Ancona: una pesca que mata a las dos especies por igual sube la tasa de muerte de los depredadores y baja la de crecimiento de las presas, y eso, en el modelo, sube el promedio de presas y baja el de depredadores; al pescar menos, pasa lo contrario.
El modelo tiene además una cantidad que no cambia. Si divides una ecuación por la otra, el tiempo desaparece y las variables se separan:
Integrando los dos lados queda que
vale lo mismo en todo momento. Las trayectorias, en el plano de presas contra depredadores, son curvas de nivel de , y esas curvas son cerradas: las poblaciones no se estabilizan ni se extinguen, sino que dan vueltas para siempre.
━ presas (x) · ━ depredadores (y)
Equilibrio en (30,0, 20,0). Las presas van de 12 a 60 y los depredadores de 9 a 37; cada ciclo dura unos 9,5 unidades de tiempo, y el pico de depredadores llega 1,7 después del de presas. La cantidad que el modelo conserva se movió apenas una parte en 1011 en todo el recorrido.
La animación integra las ecuaciones con el método de Runge–Kutta de cuarto orden y un paso fijo de una centésima, el mismo método del péndulo del capítulo de energía. Con las tasas iniciales (, , , ) el equilibrio está en 30 presas y 20 depredadores, y partiendo de 40 presas y 10 depredadores las presas oscilan entre unas 12 y unas 60, y los depredadores entre unos 9 y unos 37. Mira el orden de los picos: primero suben las presas; con tanta comida, suben los depredadores, unas 1,7 unidades de tiempo después; los depredadores acaban con las presas, y luego se mueren de hambre, y vuelta a empezar. Un ciclo dura unas 9,5 unidades. Y la cantidad se conserva hasta la undécima cifra en todo el recorrido: la curva del plano de fase se cierra sobre sí misma. Si en vez de Runge–Kutta se usa el método de Euler, el más ingenuo, con el mismo paso, la curva no se cierra: se abre en espiral hacia afuera, un error del método y no de la naturaleza.
El período tiene una explicación limpia. Cerca del equilibrio, el sistema se comporta como una transformación lineal, con matriz
cuyos valores propios son imaginarios puros, : giro sin crecer ni encogerse. Las oscilaciones pequeñas tienen período , que con estas tasas da unas 9,1 unidades. Las grandes, como la de la animación, tardan un poco más. Mueve o y verás el período cambiar; mueve o y verás moverse el equilibrio.
Lo que el modelo no dice
Lotka–Volterra es a la ecología lo que el péndulo sin fricción es a la física: falso en los detalles y precioso para pensar. Supone que las presas, sin depredadores, crecerían sin límite, cuando en realidad se les acabaría la comida. Supone que cada depredador come más mientras más presas haya, sin saciarse nunca. Y sus ciclos son frágiles: el tamaño de la oscilación depende solo de dónde empezaste, y casi cualquier cambio pequeño en las ecuaciones los convierte en espirales que se apagan o que crecen. Los modelos que usan los ecólogos le agregan esos ingredientes, y algunos producen ciclos que sí son robustos.
Hay ciclos reales que recuerdan al modelo. El más citado son los registros de pieles que la Compañía de la Bahía de Hudson compró durante muchas décadas en Canadá, donde las liebres y los linces suben y bajan con un período de unos diez años, el lince detrás de la liebre. Pero los estudios de campo mostraron que la historia es más complicada: las liebres también dependen de su comida y de otros depredadores. El modelo no explica ese ciclo; enseña a buscar la clase de mecanismo que lo produce.
Me quedo con la imagen del tronco. Un ecosistema no es una colección de especies, sino una red de flujos: energía que entra como luz y sale como calor, materia que da vueltas sin parar, y poblaciones que suben y bajan empujándose unas a otras. Cuando se mira un país lleno de especies, como en la biodiversidad de Colombia, lo que hay detrás no es solo mucha vida, sino muchas redes de estas, distintas en cada piso de la montaña.