Parte XI · Lo vivo que observo
Fotosíntesis
Se construye sobre: La célula como máquina, Energía, El espectro electromagnético
Piensa en un árbol de mango que tiene veinte años. Pesa varias toneladas, entre tronco, ramas, raíces y hojas. La pregunta es de niño y casi nadie se la hace: ¿de dónde salió todo eso? La respuesta intuitiva es “de la tierra”, y es casi completamente falsa. El hueco alrededor del árbol no se ha ido hundiendo. Lo que hay en esa madera vino, sobre todo, del aire.
En el siglo XVII Jan Baptista van Helmont hizo el experimento con paciencia: sembró un sauce pequeño en una matera con tierra pesada, lo regó durante cinco años, y al final el árbol había ganado decenas de kilos mientras la tierra apenas había perdido peso. Concluyó que todo venía del agua. Acertó a medias, y la mitad que le faltaba era invisible: un gas que forma menos del 0,05 % del aire, el dióxido de carbono. Este capítulo es sobre la reacción que convierte ese gas en árbol.
La ecuación y lo que esconde
En los libros de colegio aparece así:
Es la combustión de la glucosa al revés, la de la respiración y el metabolismo. Quemar glucosa libera unos 2.800 kJ por mol; armarla los cuesta. Es, como vimos en reacciones químicas, una reacción endotérmica, y alguien tiene que pagar la diferencia: la luz.
La ecuación es correcta en el balance de átomos, pero engaña en algo importante. Si la miras sin pensar, parece que el oxígeno que sale viene del CO₂: le quitas el carbono y queda el O₂. No es así. En los años treinta, Cornelis van Niel estudiaba bacterias que hacen fotosíntesis con sulfuro de hidrógeno en lugar de agua, y que en vez de oxígeno sueltan azufre. La analogía sugería que, en las plantas, el oxígeno debía salir del agua, como el azufre sale del H₂S. A comienzos de los cuarenta, un grupo en Berkeley (entre ellos Samuel Ruben y Martin Kamen) dio a algas agua marcada con oxígeno-18, un isótopo más pesado, y el oxígeno liberado salió marcado en la misma proporción que el agua. Ese experimento tenía sus complicaciones, porque el oxígeno se intercambia entre el agua y el carbonato disuelto, pero mediciones posteriores, más limpias, confirmaron la conclusión. Escrita con honestidad, la ecuación es esta:
Los doce oxígenos del O₂ vienen de doce moléculas de agua que se rompieron; los del CO₂ terminan en el azúcar y en agua nueva. El oxígeno de cada respiración tuya es, átomo por átomo, agua que una planta, un alga o una bacteria partió en dos.
Por qué las hojas son verdes
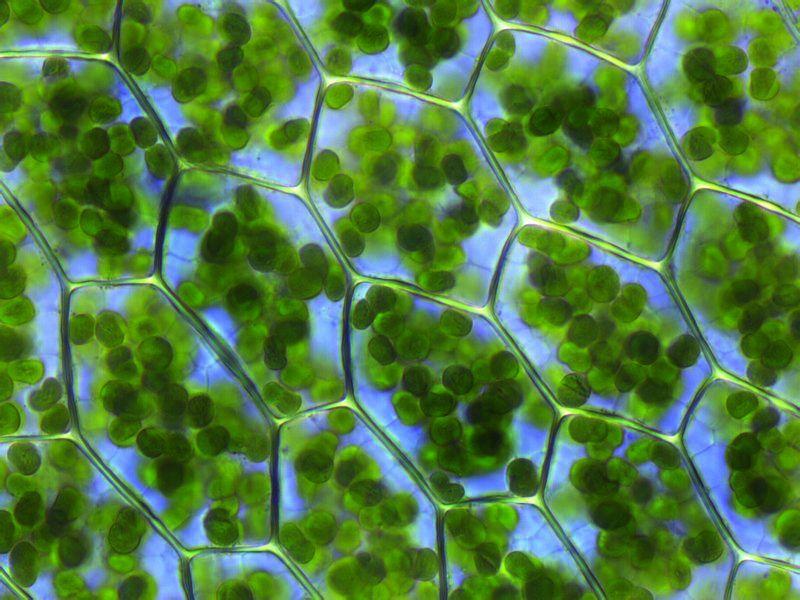
Para usar la luz primero hay que atraparla. Eso lo hace la clorofila: un anillo grande de carbono y nitrógeno con un átomo de magnesio en el centro y una cola larga que la ancla a las membranas del cloroplasto, el orgánulo que vimos en la célula. El anillo tiene una cadena de enlaces dobles y sencillos alternados, y en moléculas así los electrones quedan repartidos sobre todo el anillo; los saltos entre sus niveles de energía caen justo en la franja visible del espectro, del mismo modo que los saltos de los electrones del hidrógeno, en los átomos, caían en líneas precisas. Hay dos clorofilas principales en las plantas, la a y la b, que difieren en un solo grupo de átomos, y eso basta para correr sus picos.
Recorre el espectro visible y mira cuánto absorbe cada clorofila. Las curvas son aproximadas, armadas con campanas cerca de los picos medidos en solvente y normalizadas a su máximo; en la hoja viva se corren un poco.
nm · línea punteada oliva: la mezcla de la hoja, unas tres de a por cada una de b
- absorbe a 550 nm
- 0 %
- energía del fotón
- 2,25 eV
- llega a la química
- como mucho 81 %
- de todo el visible
- absorbe 28 %
A 550 nm la capa de pigmento absorbe 0 %. Esta luz pasa casi intacta o rebota: es la que llega a tus ojos cuando miras la hoja. Si se absorbe, el fotón trae 2,25 eV, pero solo unos 1,82 llegan a la química: el resto se vuelve calor.
Lo que muestra la animación es la respuesta: las dos clorofilas absorben fuerte en el azul y en el rojo, y casi nada en el verde. La luz blanca que entra a la hoja sale empobrecida en sus dos extremos, y lo que sobra, lo que rebota o la atraviesa, es sobre todo verde. Ese verde es el que llega a tus conos M y L y que tu cerebro nombra, como contamos en conos y bastones. La hoja no “es” verde: es verde la luz que no quiso.
Dos matices para no exagerar. Las curvas de la animación son aproximadas y corresponden a pigmentos disueltos; dentro de una hoja real la luz rebota muchas veces entre células, recorre un camino largo y termina absorbida en buena parte también en el verde, aunque menos que en el rojo y el azul. Y la hoja tiene otros pigmentos, los carotenoides, amarillos y naranjas, que ayudan en el azul y protegen a la clorofila del exceso de luz. Por qué la evolución se quedó con un pigmento que desperdicia el centro del espectro, justo donde el Sol entrega más, es una pregunta abierta con varias hipótesis y ninguna cerrada.
La fase luminosa: una represa de protones
Cuando la clorofila absorbe un fotón, uno de sus electrones sube a un nivel de energía más alto. Cientos de clorofilas trabajan como antena: se pasan esa excitación de una a otra hasta que llega a un par especial de clorofilas, el centro de reacción, donde el electrón excitado ya no vuelve: salta a otra molécula. Ahí la luz se volvió química.
Hay dos de estos centros en serie, el fotosistema II y el fotosistema I. El II hace una de las cosas más difíciles de toda la química de la vida: después de perder su electrón queda tan ávido de otro que se lo arranca al agua. Un grupo de cuatro átomos de manganeso y uno de calcio va acumulando cuatro de esas “deudas” y entonces rompe dos moléculas de agua de una vez:
El oxígeno se suelta como desecho. Los electrones viajan por una cadena de moléculas, como bajando una escalera, y en el camino bombean protones hacia el interior de unos sacos membranosos, los tilacoides. Al final, el fotosistema I les da un segundo empujón con otro fotón y los entrega a una molécula transportadora, el NADPH. Los protones acumulados hacen lo que contamos en la célula: bajan por la ATP sintasa y la hacen girar, y cada vuelta arma ATP. Es la misma turbina de las mitocondrias, con la energía entrando por el otro lado.
La cuenta mínima es de dos fotones por electrón, uno en cada fotosistema, y cuatro electrones por cada O₂: ocho fotones por molécula de oxígeno. Las mediciones dan un poco más, del orden de nueve o diez, porque nada es perfecto.
El ciclo de Calvin: carpintería con carbono
El ATP y el NADPH son energía y electrones en forma de moneda. Falta gastarlos en armar azúcar, y eso pasa en el líquido del cloroplasto, sin necesidad directa de luz. La ruta la descifraron Melvin Calvin, Andrew Benson y James Bassham entre finales de los cuarenta y los cincuenta, dándoles a algas CO₂ con carbono-14, radiactivo, y matándolas a intervalos de segundos para ver en qué moléculas aparecía el carbono primero y en cuáles después.
El ciclo, en cualitativo, es así: una molécula de cinco carbonos, la ribulosa bifosfato, atrapa un CO₂ y se parte en dos de tres carbonos. Con ATP y NADPH esas moléculas se cargan de energía y se vuelven un azúcar de tres carbonos. Por cada tres CO₂ que entran, sale un azúcar de tres carbonos neto; el resto se reacomoda, gastando más ATP, para reconstruir las ribulosas del principio. Por eso es un ciclo: la máquina se rearma sola en cada vuelta.
Dos de esos azúcares hacen una glucosa, y con glucosa la planta hace todo lo demás: la quema para vivir, la encadena en almidón para guardarla o en celulosa para construirse, como vimos en las moléculas de la vida. El tronco del mango es, literalmente, CO₂ encadenado.
RuBisCO, la enzima torpe
La enzima que hace el primer paso, pegar el CO₂ a la ribulosa, se llama RuBisCO, y es con toda probabilidad la proteína más abundante del planeta. En una hoja puede ser cerca de la mitad de toda la proteína soluble. Que haya tanta es, en parte, porque es mala en su trabajo. Muchas enzimas despachan miles de moléculas por segundo; la RuBisCO, unas pocas. La planta compensa la lentitud con cantidad.
Y tiene un defecto peor: confunde el CO₂ con el O₂. A veces pega un oxígeno en lugar de un carbono, y el producto no sirve; la planta gasta energía y suelta CO₂ ya fijado para reciclarlo. Se llama fotorrespiración, y empeora con el calor, porque al subir la temperatura la enzima se confunde más y el CO₂ se disuelve peor que el O₂. Una explicación muy aceptada es histórica: la RuBisCO evolucionó hace miles de millones de años, en una atmósfera con mucho CO₂ y casi nada de oxígeno, cuando distinguir los dos no importaba. El oxígeno que hoy la estorba lo fabricó la fotosíntesis misma. Es un buen ejemplo de lo que cuenta la evolución: no diseña, remienda lo que ya hay.
C3, C4 y CAM: tres formas de remendar
La mayoría de las plantas, como el arroz, el trigo, el café o el frijol, hacen la fotosíntesis tal como la conté: el primer producto estable tiene tres carbonos, y por eso se les dice C3.
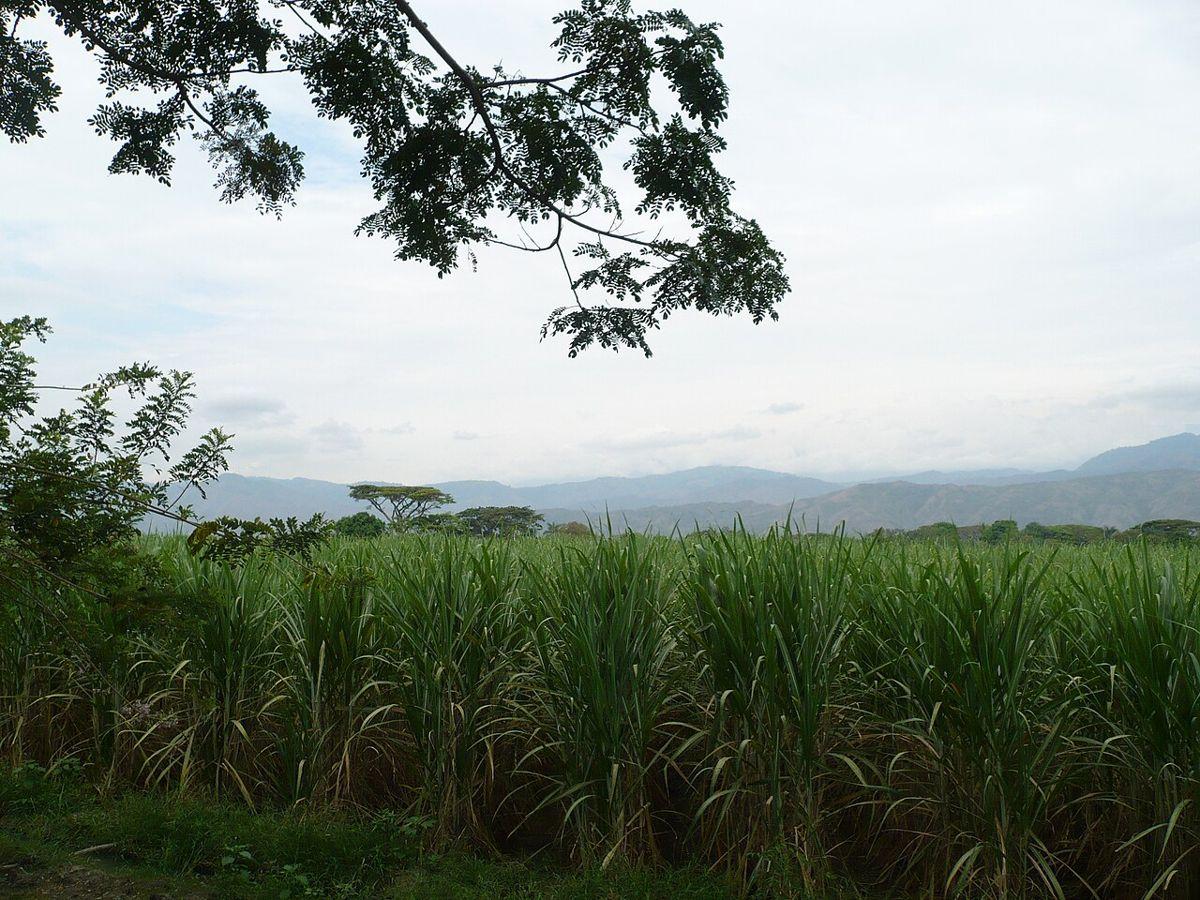
Otras inventaron una bomba de CO₂. Las plantas C4 atrapan el carbono primero con otra enzima que no se confunde con el oxígeno, lo guardan en una molécula de cuatro carbonos y la llevan a unas células interiores que rodean los conductos de la hoja. Ahí lo sueltan, concentrado, justo donde está la RuBisCO, que trabaja rodeada de CO₂ y casi no se equivoca. Cuesta ATP extra, pero en sol fuerte y calor paga con creces. Son C4 el maíz, el sorgo y la caña de azúcar, que en el valle del río Cauca crece con sol todo el año y es de los cultivos que más biomasa producen por hectárea. Se estima que las C4 son una fracción pequeña de las especies de plantas, pero cerca de una cuarta parte de la producción fotosintética en tierra firme.
La tercera solución separa los pasos en el tiempo en vez del espacio. Las plantas CAM abren sus poros, los estomas, de noche, cuando el aire es fresco y se pierde menos agua; guardan el CO₂ como ácido en sus vacuolas y de día, con los estomas cerrados, lo sueltan para el ciclo de Calvin. Son CAM la piña, los cactus, el agave y muchas orquídeas y bromelias que viven sobre los árboles, donde el agua escasea aunque llueva. Cada estrategia es una respuesta distinta al mismo dilema: abrir la hoja para que entre el CO₂ es abrirla para que se escape el agua. Ese dilema organiza buena parte de cómo está hecha una planta.
La cuenta de la eficiencia
¿Qué tan buena es esta máquina? Hagamos la cuenta por partes. Un fotón de 680 nm, el rojo que usa el fotosistema II, lleva eV; un mol de ellos, unos 176 kJ. Ocho fotones por O₂ y seis O₂ por glucosa dan 48 fotones:
Un tercio de la energía de la luz roja absorbida termina guardada en azúcar. No está mal. Pero eso es en el mejor caso, y la realidad le va restando pedazos. Solo un poco menos de la mitad de la energía del Sol cae en el rango que la clorofila usa, entre 400 y 700 nm. Un fotón azul trae unos 2,9 eV, pero el pigmento excitado cae en una fracción de billonésima de segundo a su nivel más bajo, el mismo que alcanza uno rojo, y el exceso se vuelve calor: en la animación, a 430 nm solo llega a la química un 63 % de la energía del fotón. Luego están la fotorrespiración, la respiración de la propia planta y la saturación: con sol de mediodía llegan más fotones de los que el ciclo de Calvin alcanza a procesar.
Con todo eso descontado, un análisis muy citado, el de Xin-Guang Zhu, Stephen Long y Donald Ort, estima un techo teórico de alrededor del 4,6 % de la energía solar convertida en biomasa para las plantas C3 y de un 6 % para las C4. En el campo, a lo largo de una temporada, un cultivo típico guarda uno o dos de cada cien julios que le llegan, la cifra que vimos en energía. Un panel solar de silicio, de los que contamos en semiconductores, convierte cerca del 20 %. Pero el panel no se fabrica ni se repara solo, ni guarda la energía para la noche. La hoja sí, con agua, aire y unos minerales.
Casi todo viene de aquí
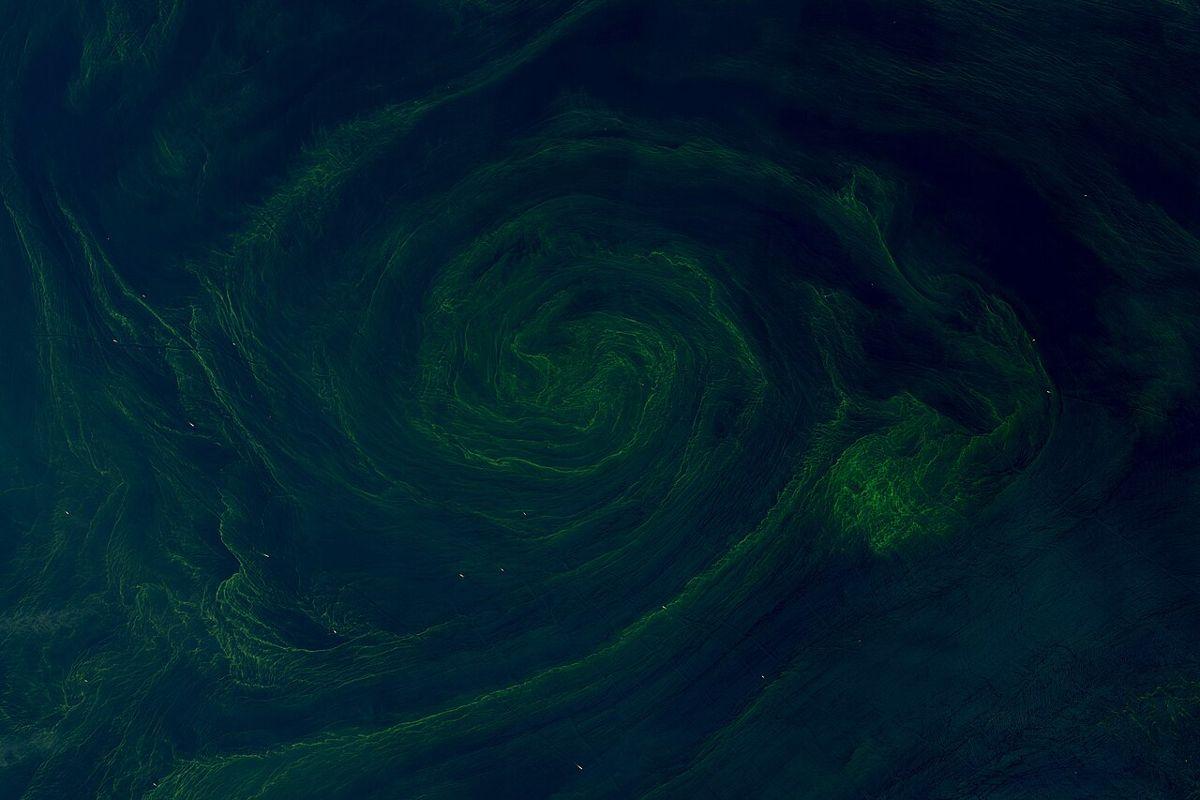
El oxígeno libre de la atmósfera tiene ese origen. Durante cerca de la mitad de la historia de la Tierra el aire casi no tuvo O₂; empezó a acumularse hace unos 2.400 millones de años, probablemente cuando las cianobacterias llevaban ya un buen tiempo rompiendo agua. Los cloroplastos de cada planta descienden de una de esas cianobacterias, tragada por otra célula. Y hoy, cerca de la mitad de la fotosíntesis del planeta no la hacen los bosques sino el fitoplancton de los océanos, algas y bacterias que no se ven.
La comida también viene de aquí. Todo lo que comes es planta o animal que, directa o indirectamente, comió planta. Las cadenas de los ecosistemas empiezan casi siempre en un organismo que fija carbono con luz; las excepciones, como las comunidades de las fuentes hidrotermales, que viven de la química de la roca, son raras. Y el carbón, el petróleo y el gas son fotosíntesis de hace millones de años, guardada bajo tierra.
Me gusta mirar así un bosque: como una superficie enorme que recibe luz concentrada, la de un Sol a casi 6.000 grados, y la usa para ordenar átomos, pagando ese orden con el calor que devuelve al cielo. Es la versión vegetal de lo que vimos en qué es la vida y en termodinámica: la vida no consume energía, consume su baja entropía. Cada especie de la lista de naturaleza que es planta, alga o liquen es una de estas fábricas, y Colombia, con su biodiversidad, tiene muchas maneras distintas de construirlas.