Parte XI · Lo vivo que observo
Evolución y el árbol de la vida
Se construye sobre: Qué es la vida, Probabilidad
Imagina que vas por un sendero de la cordillera, ves una flor que no conoces, le tomas una foto con el celular y la subes a iNaturalist. En un par de segundos la aplicación te propone un nombre. A veces es un nombre de especie, con apellido en latín. A veces es más prudente y te dice algo como “estoy bastante seguro de que es de este género”. Y cuando se equivoca, casi nunca se equivoca hacia cualquier parte: confunde una orquídea con otra orquídea, no con un helecho.
Esa última observación es la puerta de este capítulo. Que los errores caigan “cerca” quiere decir que hay una geometría en los nombres: unos seres vivos están más cerca de otros. Y esa geometría no la inventamos para ordenar un catálogo. Es la huella de una historia.
Del mecanismo al patrón
En qué es la vida conté el mecanismo: variación, herencia y selección, con las polillas de Inglaterra y un poco de deriva por azar. Aquí me interesa la otra mitad de la idea de Darwin, que es más vieja que el mecanismo y quizá más radical: la ascendencia común. Si las especies cambian y a veces se parten en dos, entonces dos especies cualesquiera de hoy tuvieron, en algún momento, una misma población ancestral. Tú y el guayacán. Tú y la levadura del pan.
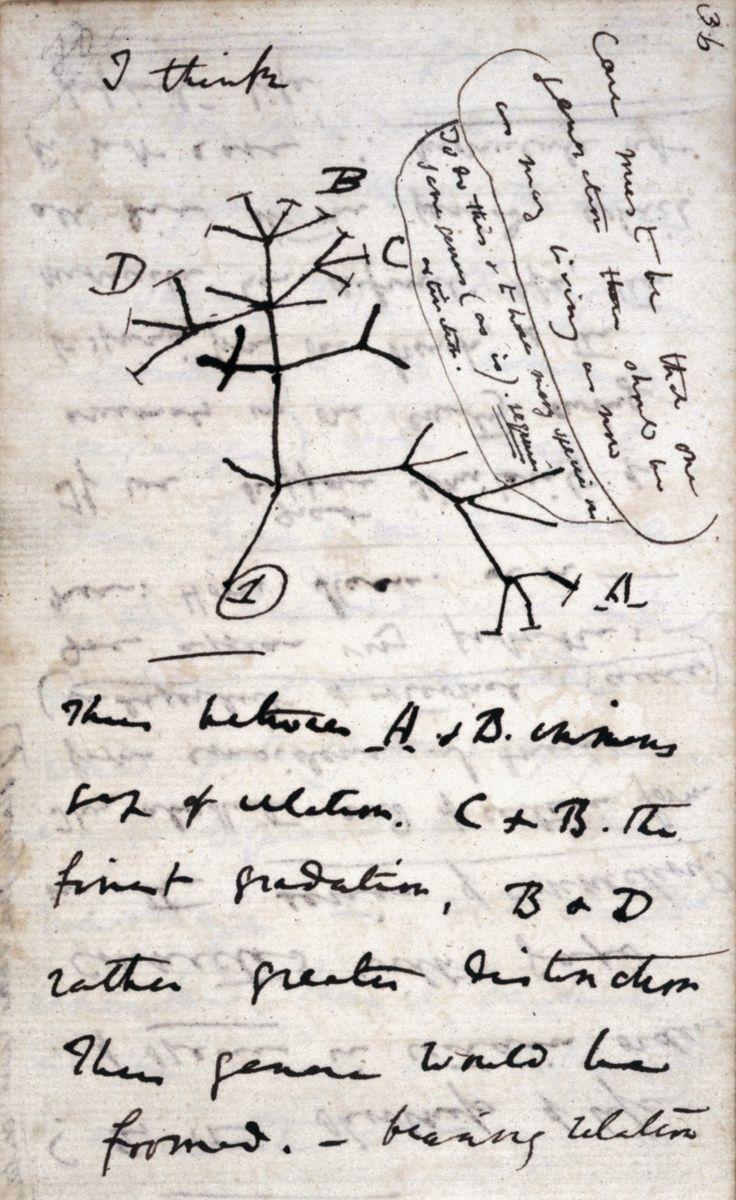
Si eso es cierto, la historia de la vida tiene forma de árbol: un tronco que se ramifica, ramas que se vuelven a ramificar, y las especies de hoy en las puntas. Darwin dibujó un primer borrador en uno de sus cuadernos, en 1837, encabezado por un “I think”; y la única figura de El origen de las especies, de 1859, es un diagrama de ramas. Leer el árbol tiene una regla sencilla y fácil de olvidar: el parentesco no se mide por lo parecidas que se ven dos puntas, sino por lo reciente de su ancestro común. Ninguna especie de hoy es el ancestro de otra de hoy; el chimpancé no es tu abuelo, es tu primo.
Reconstruir el árbol con rasgos compartidos
Nadie vio el árbol crecer. Hay que reconstruirlo desde las puntas, y la primera herramienta fueron los cuerpos. Tu brazo, el ala de un murciélago y la aleta de una ballena tienen los mismos huesos en el mismo orden (uno, luego dos, luego muchos pequeños, luego dedos) aunque sirven para cosas muy distintas. Eso se llama homología: semejanza heredada de un ancestro común. Es distinta de la analogía, la semejanza que aparece por separado porque resuelve el mismo problema, como las alas de un murciélago y las de una mariposa.
A mediados del siglo XX, el entomólogo alemán Willi Hennig convirtió esto en método: no todo rasgo compartido sirve para agrupar. Que tú y una lagartija tengan columna vertebral no dice que sean parientes cercanos, porque la columna la tienen también los peces; es un rasgo viejo. Lo que agrupa son las novedades compartidas: el pelo y la leche agrupan a los mamíferos porque aparecieron una vez, en su ancestro, y se heredaron. Un grupo bien hecho, un clado, es un ancestro con todos sus descendientes. Con esa regla, algunos grupos de toda la vida se desarman. “Peces” no es un clado, porque el ancestro común de una trucha y un tiburón también es ancestro tuyo. Y las aves quedan dentro de los dinosaurios: son el linaje de dinosaurios que sobrevivió.
Leer el árbol en el ADN
Hoy la herramienta principal son las secuencias. El ADN se copia con errores raros, y los errores se heredan, como cuento en las moléculas de la vida. Dos linajes que se separan empiezan a acumular cambios cada uno por su lado, así que, a grandes rasgos, más diferencias quiere decir más tiempo separados. Si cada linaje acumula en promedio cambios por posición y por año, dos especies que se separaron hace años difieren en una fracción de posiciones cercana a
con el 2 porque cambian las dos ramas. Esa es la idea del reloj molecular, propuesta en los años sesenta. Es un reloj imperfecto: la velocidad varía entre genes y entre linajes, y por eso se calibra con fósiles de edad conocida. Además, el conteo se satura. Con el tiempo, una misma posición puede cambiar dos veces, o volver a su letra original, y esos cambios no se ven. El modelo más simple de esa corrección, el de Jukes y Cantor, supone que cada letra cambia a cualquiera de las otras tres con la misma probabilidad, y estima el número real de cambios por posición a partir de la fracción observada :
Para pequeño, ; a medida que se acerca a 3/4, que es lo que difieren dos secuencias al azar, se dispara: ya no queda señal. Para el humano y el chimpancé, en las partes del genoma que se pueden alinear una contra otra, la fracción de letras distintas anda alrededor del uno por ciento.
Con la matriz de diferencias en la mano, el árbol más simple se arma así: busca el par más parecido, únelo en un ancestro, trata al par como un solo grupo cuya distancia a los demás es el promedio de las distancias de sus miembros, y repite. Ese método se llama UPGMA. La animación lo hace con cinco secuencias de 24 letras. Las secuencias son inventadas: las construí a mano para que el árbol coincida con el parentesco que sí está bien establecido entre estos animales, así que no son evidencia de nada; sirven para ver el método funcionar.
secuencias inventadas · ámbar: difiere de la especie elegida
| hum | chi | gor | rat | gal | |
|---|---|---|---|---|---|
| hum | 0 | 2 | 4 | 8 | 17 |
| chi | 2 | 0 | 4 | 8 | 17 |
| gor | 4 | 4 | 0 | 8 | 17 |
| rat | 8 | 8 | 8 | 0 | 17 |
| gal | 17 | 17 | 17 | 17 | 0 |
altura de cada unión = diferencias ÷ 2
Cada paso busca, en la matriz, el par de grupos que menos difiere (en ámbar) y lo une en un ancestro común.
Paso a paso: humano y chimpancé difieren en 2 letras y se unen primero, a altura 1 (la mitad de la distancia, porque cada rama puso la mitad de los cambios). El gorila está a 4 de los dos y se une a altura 2. El ratón, a 8 de cada primate, entra a altura 4, y la gallina, a 17 de todos los mamíferos, cierra el árbol a 8,5. Ahora elige el ratón y mútalo un par de veces: se aleja de los demás y su unión sube, pero mientras las mutaciones no lo acerquen por casualidad a la gallina, la forma del árbol aguanta. Esa robustez es lo que hace útil el método.
UPGMA tiene un supuesto escondido: que todos los linajes cambian a la misma velocidad. Si uno corre más, parece más lejano de lo que es y el método lo ubica mal. Por eso la filogenia actual usa otros métodos, como la máxima verosimilitud y la inferencia bayesiana, que construyen un modelo probabilístico de cómo cambian las letras y buscan el árbol que hace más probables los datos. El problema de fondo es de complejidad: con especies hay
árboles binarios con raíz distintos. Con 5 especies son 105; con 10, unos 34 millones; con 20, unos . No se pueden revisar todos, y encontrar el mejor bajo criterios usuales, como el de menor número de cambios, es un problema NP-difícil. Se buscan buenos árboles con heurísticas, y se mide qué tan bien apoyada está cada rama.
Qué es una especie
Las puntas del árbol tienen nombres de especie, pero la palabra es más resbalosa de lo que parece. La definición más conocida, el concepto biológico que defendió Ernst Mayr a mediados del siglo XX, dice que una especie es un grupo de poblaciones que se cruzan entre sí y quedan aisladas reproductivamente de otros grupos. Funciona bien para muchos animales: el caballo y el burro pueden tener una mula, pero la mula casi siempre es estéril, así que los dos linajes no se mezclan.
Y falla en muchos otros lugares. Las bacterias no se cruzan: se dividen. Con los fósiles no se puede probar quién se cruzaba con quién. Muchas plantas forman híbridos fértiles con especies vecinas. Y como la especiación es gradual, siempre habrá poblaciones a medio camino. Por eso conviven decenas de conceptos de especie: por aislamiento reproductivo, por linaje en el árbol, por diferencias medibles. No me parece un escándalo, sino la misma lección de qué cuenta como real: la naturaleza es un continuo de linajes que se separan despacio, y “especie” es un corte que hacemos en ese continuo, útil y casi siempre claro, borroso en los bordes. Igual que “vida”.
Linneo, los nombres y el árbol
El sistema de nombres es anterior a Darwin. El naturalista sueco Carl Linneo generalizó el nombre binomial: un género con mayúscula y un epíteto con minúscula, en cursiva. El café que se cultiva en las laderas del Eje Cafetero es Coffea arabica; tú eres Homo sapiens. Por convención, la botánica toma como punto de partida su Species Plantarum de 1753, y la zoología, la décima edición de su Systema Naturae, de 1758. La gracia del binomio es que un nombre sirve en todos los idiomas: lo que en una región llaman de una forma y en otra de otra tiene un solo nombre científico, regido por códigos internacionales de nomenclatura.
Linneo también ordenó los nombres en cajas dentro de cajas: especie, género, familia, orden, clase, filo, reino (y hoy, encima, dominio). Pensaba en un orden de la creación, no en una genealogía. Lo notable es que las cajas encajan bastante bien con las ramas, precisamente porque la semejanza heredada sigue al árbol. Pero no son lo mismo. La filogenia es la estructura: quién comparte ancestro con quién y en qué orden. Los rangos son una convención encima de ella: decidir que un clado es “familia” y otro “orden” no mide nada comparable entre una familia de escarabajos y una de orquídeas. Cuando la filogenia cambia, por datos nuevos, los nombres a veces cambian con ella, y eso explica que una planta que conocías por un nombre aparezca de pronto con otro.
Tres dominios
La sorpresa más grande que dio la lectura de secuencias vino de lo que no se ve. Durante mucho tiempo se dividió la vida en procariotas (células sin núcleo, como las bacterias) y eucariotas (con núcleo, como las de tu cuerpo, las plantas y los hongos). En 1977, Carl Woese y sus colegas compararon el ARN de los ribosomas, una molécula que todas las células tienen y que cambia despacio, y encontraron que entre los “procariotas” había dos linajes tan distintos entre sí como cualquiera de ellos lo es de los eucariotas: las arqueas, un grupo aparte. Y en 1990 propusieron ordenar la vida en tres dominios: Bacteria, Archaea y Eukarya. Las arqueas parecen bacterias por fuera, pero en buena parte de su maquinaria molecular se parecen más a nosotros.
El árbol también trae sorpresas cerca de casa. Los hongos son parientes más cercanos de los animales que de las plantas. Tus mitocondrias descienden de una bacteria que hace mucho vivió dentro de otra célula, y los cloroplastos de las plantas, de una cianobacteria, como se cuenta en la fotosíntesis. Hay una hipótesis con apoyo creciente según la cual los eucariotas surgieron de dentro de las arqueas, lo que dejaría dos dominios en la base y no tres. Y en los microbios, los genes también pasan de lado entre linajes distintos (la transferencia horizontal), de modo que cerca de la raíz el árbol se parece más a una red. El árbol es la mejor imagen que tenemos, no un dibujo perfecto.
Por qué iNaturalist puede sugerirte un nombre
Volvamos a la flor del sendero. Lo que te sugiere el nombre es un modelo de visión por computador: una red neuronal entrenada con una cantidad enorme de fotos que ya tienen nombre, y no un nombre cualquiera, sino uno en el que coincidieron varias personas de la comunidad. La red aprende a convertir una imagen en una lista de probabilidades sobre los nombres posibles, y te muestra los más altos. Las sugerencias también tienen en cuenta qué se ha observado cerca del lugar donde tomaste la foto, que es información muy valiosa: muchas especies parecidas viven en regiones distintas.
El árbol aparece aquí dos veces. Primero, en los errores: las especies hermanas se parecen porque heredaron sus formas de un ancestro reciente, así que la red, que solo ve formas, se confunde sobre todo entre parientes. Segundo, en la prudencia: cuando la red no puede decidir entre varias especies de un mismo género, una manera natural de no perder lo que sí sabe es sumar sus probabilidades, y eso le permite decir con seguridad “es de este género”. Subir por las ramas hasta que la probabilidad acumulada sea alta es una manera honesta de decir lo que se sabe y nada más.
Y después vienen las personas. La sugerencia es solo una identificación entre otras. Cuando hay al menos dos identificaciones y más de dos tercios coinciden en una misma especie, y la observación tiene fecha, lugar y foto de un organismo silvestre, sube a “grado de investigación” y pasa a bases de datos que usan los científicos, y esas observaciones verificadas son, a su vez, el material con que se entrenan las versiones siguientes del modelo. Es un círculo bonito: la gente le enseña a la máquina, y la máquina le ayuda a la gente a empezar. En mi página de naturaleza está la lista de especies que he registrado así; cada nombre de esa lista es una punta del mismo árbol.
Una sola familia
Lo que me queda de todo esto es una imagen de escala. Cada vez que le pones nombre a una planta, estás ubicándola en un árbol que tiene más de tres mil quinientos millones de años y que te incluye a ti. Los nombres de Linneo son direcciones en ese árbol; las secuencias son su registro escrito; los modelos que reconocen fotos aprendieron, sin que nadie se lo pidiera, que lo parecido suele ser pariente. Y la definición de especie, con sus bordes borrosos, es el recordatorio de que el árbol no está quieto: sigue creciendo, despacio, en cada población que hoy varía, hereda y es seleccionada.