Parte IX · De la energía a la vida
La célula como máquina
Se construye sobre: Moléculas de la vida, Reacciones y energía química
Hay un experimento de colegio que muchos hemos hecho y que sigue siendo una pequeña revelación. Pasas un palillo por el interior de la mejilla, lo frotas sobre un portaobjetos, le pones una gota de tinte y lo miras al microscopio. Aparecen unas manchas planas, irregulares, cada una con un punto más oscuro en el centro. Eres tú. Pedazos de ti que hace un minuto estaban vivos, cada uno con su propia frontera, su propio núcleo y su propia maquinaria.
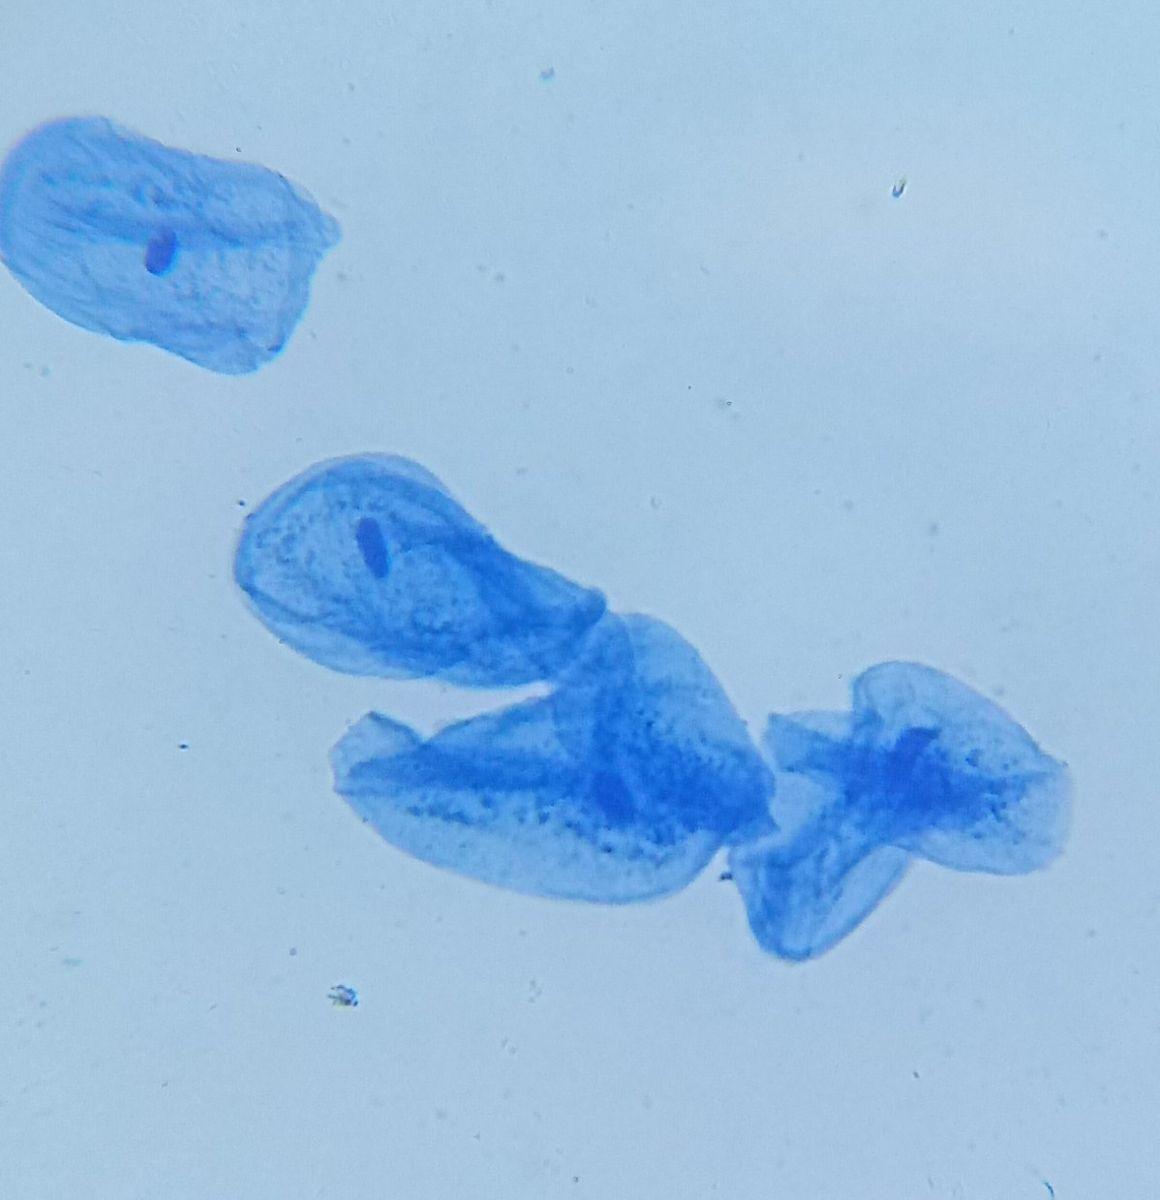
El capítulo anterior terminó con las moléculas de la vida sueltas: agua, azúcares, lípidos, proteínas, ácidos nucleicos. Ninguna está viva. Este es sobre lo que pasa cuando se encierran juntas detrás de una membrana y se organizan como una fábrica: con aduanas, planos, obreros, una moneda y una planta eléctrica.
Una frontera que elige
La membrana es la bicapa de fosfolípidos que se arma sola en el agua, apenas unos cinco nanómetros de grosor. Su interior aceitoso deja pasar sin problema moléculas pequeñas y sin carga, como el oxígeno o el dióxido de carbono, pero es casi una pared para los iones, que llevan carga y van envueltos en agua. Eso la vuelve útil: si nada con carga cruza por su cuenta, la célula puede decidir qué cruza.
Lo decide con proteínas incrustadas en la bicapa. Unas son canales, túneles que se abren para un ion específico y lo dejan bajar a favor de su concentración. Otras son bombas, que lo suben en contra, pagando con energía. La más conocida es la bomba de sodio y potasio: por cada ciclo saca tres iones de sodio y mete dos de potasio. Así mantiene adentro mucho potasio y poco sodio; y como la membrana deja escapar un poco de potasio por sus canales, ese goteo de carga positiva hacia afuera deja el interior negativo respecto al exterior. Hay un voltaje a través de cada una de tus membranas, y tus neuronas viven de abrir y cerrar canales para jugar con él.
Una frontera selectiva es, en el fondo, una forma de no estar en equilibrio con el entorno: adentro hay más potasio, menos sodio, más proteínas y más orden que afuera. Mantener esa diferencia cuesta, y esa cuenta vuelve en el último capítulo de esta parte.
Dos maneras de ser célula
Toda la vida conocida está hecha de células, y toda célula viene de otra que se dividió: eso quedó establecido en el siglo XIX, después de que los microscopios mostraran células en cada tejido que se miraba. Lo que se vio después es que hay dos grandes diseños.
Las procariotas, las bacterias y las arqueas, son pequeñas (típicamente de uno a unos pocos micrómetros) y su ADN flota en el interior sin un compartimento propio. Son las más antiguas, las más numerosas y las más versátiles químicamente: hay procariotas que comen hierro, azufre o hidrógeno. Las eucariotas (animales, plantas, hongos, algas, protozoos) suelen ser diez veces más anchas, lo que significa del orden de mil veces más volumen, y están llenas de compartimentos con membrana propia, los organelos. Tus células de la mejilla son eucariotas.
Un recorrido rápido por la fábrica eucariota. El núcleo guarda el ADN y es donde se transcribe a ARN. Los ribosomas, que también tienen las procariotas, son las máquinas que traducen el ARN mensajero en proteínas, de a un aminoácido por vez. Una red de membranas, el retículo endoplasmático y el aparato de Golgi, termina, empaca y despacha muchas de esas proteínas. Las mitocondrias son la planta eléctrica. Y en las plantas y las algas, los cloroplastos capturan la luz para fabricar azúcar.
Una célula que se comió a otra
Las mitocondrias y los cloroplastos tienen algo raro: su propio ADN, circular como el de las bacterias, sus propios ribosomas, más parecidos a los bacterianos que a los del resto de la célula, una doble membrana, y se dividen partiéndose en dos, como bacterias. La explicación aceptada es la teoría endosimbiótica, que Lynn Margulis defendió desde finales de los años sesenta contra bastante escepticismo: las mitocondrias descienden de bacterias que vivieron dentro de otra célula y nunca salieron, y los cloroplastos, de cianobacterias que pasaron por lo mismo más tarde.
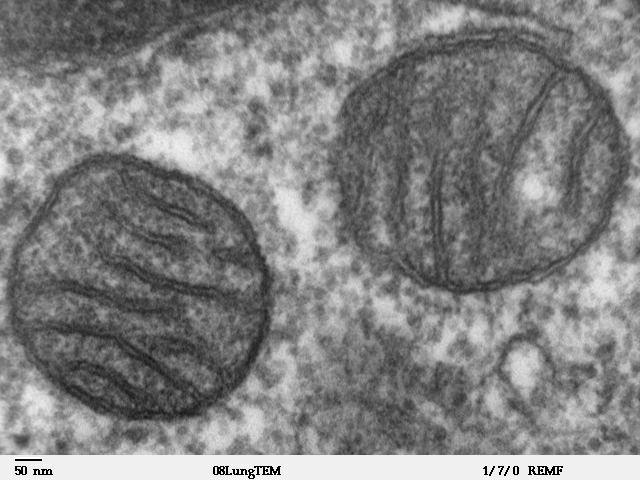
Hoy la idea general está respaldada por la comparación de genomas, que emparenta a las mitocondrias con un grupo concreto de bacterias. Lo que sigue en discusión son los detalles: cómo era exactamente la célula anfitriona (la evidencia actual apunta a que estaba emparentada con las arqueas), en qué orden aparecieron el núcleo y las mitocondrias, y si la llegada de la mitocondria fue lo que hizo posible la complejidad de las eucariotas. Conviene separar lo establecido (el origen bacteriano de estos organelos) de lo que se sigue investigando.
Enzimas: obreros que no se gastan
Casi toda la química de una célula ocurriría sola, en principio, pero tan despacio que no serviría para nada. Como se ve en reacciones y energía química, para pasar de reactivos a productos hay que cruzar una barrera, la energía de activación. Un catalizador ofrece un camino con una barrera más baja, y las enzimas, que son casi todas proteínas, son catalizadores asombrosos: algunas aceleran su reacción por factores de más de un billón.
Dos precisiones. La enzima no se consume: sale de cada reacción igual que entró, lista para la siguiente. Y no cambia hacia dónde va la reacción, solo qué tan rápido llega: no puede volver favorable algo que la termodinámica prohíbe. Lo que la hace específica es la forma. Su sitio activo es un bolsillo donde encaja una molécula concreta, el sustrato, y casi ninguna otra: la forma que se plegó a partir de la secuencia es, aquí, la función.
¿Qué tan rápido trabaja una enzima? Depende de cuánto sustrato haya, y la relación tiene una forma muy característica. En 1913, Leonor Michaelis y Maud Menten la describieron con un modelo sencillo: la enzima atrapa al sustrato , forma un complejo, y lo suelta convertido en producto :
Si hay mucho más sustrato que enzima, y el complejo se forma y se deshace mucho más rápido de lo que se gasta el sustrato, la velocidad de la reacción es una función de la concentración de sustrato con dos parámetros:
es la velocidad tope, cuando todas las enzimas están ocupadas todo el tiempo. , la constante de Michaelis, es la concentración de sustrato a la que la enzima va exactamente a media máquina: si pones en la fórmula, sale . Un pequeño significa una enzima que encuentra su sustrato aunque escasee.
Zona intermedia: más sustrato ayuda, pero cada vez menos.
Mueve el sustrato y mira la forma de la curva. Al principio sube casi en línea recta: con poco sustrato, casi todas las enzimas están libres, y duplicar el sustrato casi duplica la velocidad. La pendiente en el origen es , una derivada que se lee directo de la fórmula. Después la curva se dobla. Si pasas de a , la velocidad no se duplica: pasa de la mitad a dos tercios de . Para llegar al 90 % necesitas nueve veces , y al 99 %, noventa y nueve veces. La curva se acerca a sin tocarla nunca: es un límite cuando . Es la saturación: una cajera atendiendo una fila; si la fila es corta, más clientes significa más ventas por minuto, pero cuando hay fila de sobra, ella ya no puede atender más rápido.
Prende el inhibidor. Un inhibidor competitivo es una molécula que se parece al sustrato y ocupa el sitio activo sin reaccionar. No cambia la velocidad tope, porque con suficiente sustrato el inhibidor pierde la competencia, pero sube el aparente: hace falta más sustrato para llegar a media máquina. Muchos medicamentos funcionan así. Las estatinas, por ejemplo, bajan el colesterol inhibiendo de forma competitiva una enzima de su síntesis.
ATP: la moneda de la célula
Las bombas, los motores y la construcción de proteínas cuestan energía, y la célula paga casi todo con la misma moneda: el ATP, adenosín trifosfato, un nucleótido con tres fosfatos en fila. Soltar el último libera energía:
(En las condiciones reales de la célula, con mucho más ATP que ADP, la energía liberada es bastante mayor.) El truco no está en quemar el ATP, sino en acoplarlo: una reacción que por sí sola no ocurriría se engancha a la ruptura del ATP, y la suma de las dos sí es favorable. Es contabilidad de energía libre, la misma de las reacciones químicas, hecha con un intermediario universal. Una moneda que todos aceptan simplifica la economía.
Y es una moneda que no se ahorra: circula. En un momento dado tienes relativamente poco ATP, una fracción minúscula de tu peso, pero lo reciclas tan rápido que, a lo largo de un día, fabricas y gastas del orden de tu propio peso en ATP. Cada molécula se usa, vuelve a ser ADP y se recarga, cientos de veces al día, quizá más de mil.
Un motor que gira con protones
¿Dónde se recarga? La mayor parte, en las mitocondrias, y de una forma que tardó en aceptarse porque no se parecía a nada. A comienzos de los años sesenta, Peter Mitchell propuso que la energía de los alimentos no se pasa directamente al ATP, sino que primero se usa para bombear protones (núcleos de hidrógeno) a través de la membrana interna de la mitocondria, como quien sube agua a una represa. Se acumulan más protones de un lado que del otro, y con ellos, una diferencia de carga: del orden de 150 a 200 milivoltios. Parece poco, pero la membrana mide unos cinco nanómetros, así que el campo eléctrico es enorme:
Treinta millones de voltios por metro, a escala de una molécula. Los protones vuelven casi todos por una puerta: la ATP sintasa. Y la ATP sintasa es, literalmente, un motor rotatorio. Los protones que bajan por ella hacen girar un anillo de subunidades incrustado en la membrana, que hace girar un eje, que deforma una cabeza fija con tres sitios donde se arma el ATP. Cada vuelta completa produce tres moléculas de ATP. Cuántos protones cuesta una vuelta depende del tamaño del anillo, que varía según el organismo (en las mitocondrias de los mamíferos son ocho). A finales de los noventa se pudo pegar un filamento al eje y filmarlo girando bajo el microscopio.
Me gusta que la solución sea tan física. La célula no guarda la energía de la comida directamente en enlaces químicos: primero la convierte en una represa de protones, una diferencia de concentración y de voltaje, y luego deja que esa represa mueva una turbina. Los cloroplastos hacen lo mismo con la energía de la luz, y las bacterias, con la membrana que las envuelve. Casi toda la vida conocida pasa su energía por un gradiente de protones.
Treinta billones
¿Cuántas de estas fábricas hay en un cuerpo? Contarlas es más difícil de lo que parece, porque las células son de tamaños muy distintos. Una estimación cuidadosa de 2016, del grupo de Ron Milo, da para una persona de referencia unos células humanas, es decir, unos treinta billones. Es una estimación, con su margen de error, y depende del tamaño y el sexo de la persona. Lo más llamativo es la composición: la gran mayoría, más de ocho de cada diez, son glóbulos rojos, que ni siquiera tienen núcleo ni mitocondrias. Y en el mismo cuerpo viven del orden de tantas bacterias como células propias, aunque por ser tan pequeñas pesan en total del orden de doscientos gramos.
Todas tus células, salvo excepciones como los glóbulos rojos, llevan el mismo genoma; lo que las diferencia es qué genes leen. Una neurona y una célula de la mejilla tienen la misma biblioteca y consultan libros distintos. Cómo se coordinan esos treinta billones, y qué pasa cuando una deja de cooperar, es una pregunta que conecta con lo que sigue: qué es la vida, y por qué todo este esfuerzo por mantener una frontera, una represa y un orden, en un universo que, según la segunda ley, tiende a deshacerlos.