Parte IX · De la energía a la vida
Moléculas de la vida
Se construye sobre: La tabla periódica y el enlace químico
Mira la etiqueta de cualquier paquete de comida. Dice carbohidratos, grasas, proteínas, y a veces menciona el agua. Es una lista de nutrición, pero también es, sin proponérselo, casi la lista completa de las piezas con que está hecho un ser vivo. Falta una sola familia, la que no viene en la etiqueta porque no la comemos por su valor energético: los ácidos nucleicos, el ADN y el ARN.
Cinco familias de moléculas. Con ellas se arma una bacteria, un guayacán y la mano con que pasas esta página. Este capítulo es sobre por qué esas y no otras, y sobre la idea que más me impresiona de toda la bioquímica: que una cadena de letras, leída de a tres, termina doblándose sola en una máquina con forma exacta.
El agua no es un fondo neutro
Todo empieza con la molécula más aburrida en apariencia. Una molécula de agua es un oxígeno con dos hidrógenos, pero no en línea recta: forman un ángulo de unos 104,5°. Y el oxígeno, como se ve en el capítulo del enlace, es mucho más electronegativo que el hidrógeno: tira de los electrones compartidos hacia su lado. El resultado es una molécula polar, con un extremo ligeramente negativo (el oxígeno) y otro ligeramente positivo (los hidrógenos). No tiene carga neta, pero tiene un lado y otro.
Esa asimetría lo cambia todo. El hidrógeno positivo de una molécula se siente atraído por el oxígeno negativo de la vecina, y se forma un puente de hidrógeno: un enlace débil, mucho más débil que el covalente que sostiene a cada molécula, que se rompe y se rehace sin parar. Cada molécula de agua puede formar hasta cuatro. El agua líquida es, en cada instante, una red de puentes que tiembla.
De esa red salen sus rarezas. Calentar agua cuesta mucho, porque antes de agitar las moléculas hay que romper puentes: por eso el mar regula el clima. Y evaporarla cuesta todavía más, porque hay que romperlos todos: por eso sudar enfría. El hielo flota, porque al congelarse los puentes fijan a las moléculas en una red abierta, menos densa que el líquido; casi cualquier otra sustancia es más densa sólida que líquida. Y el agua es un solvente extraordinario para todo lo que tenga carga o polaridad: rodea cada ion de sal con sus extremos opuestos y lo separa del cristal.
Lo que el agua no disuelve importa igual. Las moléculas sin polaridad, como el aceite, no ofrecen dónde enganchar puentes, y el agua las empuja a juntarse entre sí. No es que el aceite “odie” el agua; es que el agua, para acomodarse alrededor de algo que no puede abrazar, tendría que ordenarse más de la cuenta, y le sale más barato, en entropía, dejar al aceite aparte. Este efecto hidrofóbico va a construir las membranas y a plegar las proteínas. El agua no es el escenario de la vida; es uno de los actores.
Carbono: el que se lleva con todos
Las otras cuatro familias tienen un esqueleto de carbono. La razón está en su estructura electrónica: el carbono forma cuatro enlaces covalentes estables, consigo mismo y con hidrógeno, oxígeno, nitrógeno, fósforo y azufre. Puede hacer cadenas, anillos, ramas y dobles enlaces. Con un repertorio así, el número de moléculas posibles es prácticamente ilimitado. La vida que conocemos usa unas pocas de esas posibilidades, pero las usa de una manera muy particular: construye polímeros, cadenas largas hechas de piezas pequeñas repetidas, los monómeros. Casi siempre la pieza se une a la cadena soltando una molécula de agua (una condensación), y la cadena se rompe agregándola de nuevo (una hidrólisis). Es una reacción química que la célula hace y deshace todo el tiempo.
Azúcares: combustible y andamio
La glucosa, , es la moneda de cambio del metabolismo: las plantas la fabrican con luz, y casi todas las células la queman para sacar energía. Encadenada, da dos materiales que no se parecen en nada. Unida de una manera (enlaces que los químicos llaman α), forma el almidón de la papa y el glucógeno de tu hígado: reservas compactas que una enzima desarma rápido. Unida de otra (enlaces β), forma la celulosa, fibras rectas que se empacan unas contra otras y hacen la madera. Es la misma glucosa. Cambia solo la orientación de un enlace, y con eso cambia la forma, y con la forma, todo: tú digieres el almidón, pero no la celulosa, porque no tienes la enzima que encaja con ese otro enlace.
Esa es la primera aparición de una idea que va a volver en cada sección: en las moléculas de la vida, la función la decide la forma.
Lípidos: la cabeza que ama el agua y la cola que la evita
Los lípidos no son polímeros; son la familia de lo que no se disuelve en agua. Las grasas guardan energía de forma muy densa, más del doble por gramo que los azúcares. Pero el lípido que más me interesa es otro, el fosfolípido, porque tiene doble personalidad: una cabeza con carga, que se lleva bien con el agua, y dos colas largas de hidrocarburo, que no.
Echa fosfolípidos al agua y pasa algo que nadie tiene que dirigir: se ordenan solos en una bicapa, dos láminas espalda con espalda, las cabezas hacia el agua de afuera y de adentro, las colas escondidas en el medio. Y una bicapa con bordes expuestos tiende a cerrarse sobre sí misma en una burbuja. Es el efecto hidrofóbico otra vez. Así, sin plano ni ingeniero, aparece un adentro y un afuera, que es lo primero que necesita una célula.
Proteínas: veinte letras y un origami
Si el ADN es la biblioteca, las proteínas son casi todo lo demás: las enzimas que aceleran las reacciones, los motores que contraen tus músculos, los anticuerpos, los canales de las membranas, la hemoglobina que carga oxígeno, la opsina que, en la retina, convierte un fotón en una señal (lo cuento en el capítulo de la visión).
Todas son cadenas de aminoácidos. Hay veinte en el repertorio estándar (más un par de rarezas que solo usan algunas proteínas). Todos comparten un mismo esqueleto y se diferencian en una cadena lateral: unas tienen carga, otras son polares, otras son hidrofóbicas, una es diminuta (la glicina), otra dobla la cadena como un codo (la prolina). Se unen en fila con un enlace peptídico, otra condensación, y una proteína típica tiene cientos.
Una cadena así no se queda estirada. En el agua, las partes hidrofóbicas se esconden hacia adentro, se forman puentes de hidrógeno que enrollan tramos en hélices o los alinean en láminas, y el conjunto colapsa en una forma tridimensional precisa: el plegamiento. Un experimento clásico de Christian Anfinsen con una enzima, la ribonucleasa, mostró que si la desdoblas con químicos y luego los retiras, la cadena vuelve sola a su forma activa. La conclusión, para muchas proteínas pequeñas, es que la información de la forma ya está en la secuencia. (Muchas otras necesitan ayuda de proteínas acompañantes para no enredarse, y algunas tienen tramos que nunca adoptan una forma fija, así que es una regla con matices.)
Predecir esa forma a partir de la secuencia fue durante medio siglo uno de los grandes problemas abiertos de la biología. La cadena tiene un número astronómico de maneras de doblarse, y probarlas una por una es imposible; en algunos modelos simplificados de plegamiento, encontrar la forma óptima es incluso un problema NP-difícil, de los que se discuten en algoritmos y complejidad. Hacia 2020, un sistema de redes neuronales, AlphaFold, empezó a predecir estructuras con una precisión comparable a la experimental para muchas proteínas, y en 2024 sus creadores compartieron el Nobel de Química con un pionero del diseño de proteínas. Conviene decirlo con exactitud: no “resolvió la vida”. Predice muy bien la forma más probable de una cadena, y mucho peor cómo se mueve, cómo cambia al unirse a otras moléculas o qué hacen sus tramos desordenados. Pero convirtió en minutos lo que antes costaba años de laboratorio.
Ácidos nucleicos: un código de cuatro letras
Queda la familia que guarda las instrucciones. El ADN es un polímero de nucleótidos, cada uno con un azúcar, un fosfato y una de cuatro bases: adenina (A), citosina (C), guanina (G) y timina (T). El azúcar y el fosfato forman el esqueleto; las bases son las letras. A comienzos de los años cincuenta, Watson y Crick propusieron la doble hélice a partir de datos de difracción de rayos X, entre ellos los de Rosalind Franklin: dos hebras enrolladas en sentidos opuestos, unidas por las bases como peldaños de una escalera.
Los peldaños no se arman de cualquier manera. La A solo encaja con la T, con dos puentes de hidrógeno, y la G con la C, con tres. Esa complementariedad es la idea genial de la molécula: cada hebra determina por completo a la otra. Si tienes , la de enfrente, leída en su propio sentido, es . Para copiar el ADN basta separar las hebras y completar cada mitad. La información se guarda dos veces, y cada copia sirve de molde para reconstruir la otra.
El ARN es su primo: una sola hebra, un azúcar ligeramente distinto y uracilo (U) en lugar de timina. Su papel más conocido es de mensajero. Para fabricar una proteína, la célula copia un tramo del ADN en ARN mensajero (la transcripción), y un ribosoma lee ese mensaje y va armando la cadena de aminoácidos (la traducción).
¿Cómo se pasa de cuatro letras a veinte aminoácidos? Con palabras de varias letras. Con dos letras solo hay palabras, que no alcanzan. Con tres:
Sobran palabras, y el código las aprovecha con redundancia: la leucina tiene seis codones, el triptófano uno solo. El código genético es, en el sentido más literal, una función del conjunto de 64 codones en el de 20 aminoácidos más la señal de parada: a cada codón le corresponde exactamente una cosa, aunque varias cosas tengan más de un codón. Se descifró en los años sesenta, y es casi universal: con pequeñas variaciones (en las mitocondrias, por ejemplo), lo comparten desde las bacterias hasta nosotros.
Toca una base del ADN y elige por cuál cambiarla. Cada mutación se aplica sobre el gen original.
arriba: ADN (hebra codificante) · medio: ARN mensajero · abajo: aminoácido
Es el comienzo real del gen de la beta-globina, una de las cadenas de la hemoglobina. Toca una base del ADN y cámbiala por otra.
Lo que tienes arriba es real: los primeros diez codones del gen humano de la beta-globina, una de las cuatro cadenas de la hemoglobina. Prueba a cambiar la tercera letra de un codón; la mayoría de las veces no pasa nada (en estos diez codones, 19 de los 30 cambios posibles en tercera posición dejan el mismo aminoácido), porque la redundancia del código se concentra ahí. Es una mutación sinónima. Cambia la primera o la segunda, y lo normal es que el aminoácido cambie: una mutación de sentido erróneo. Y si conviertes, por ejemplo, el AAG del codón 9 en TAG, creas una señal de parada y la proteína queda cortada: una mutación sin sentido.
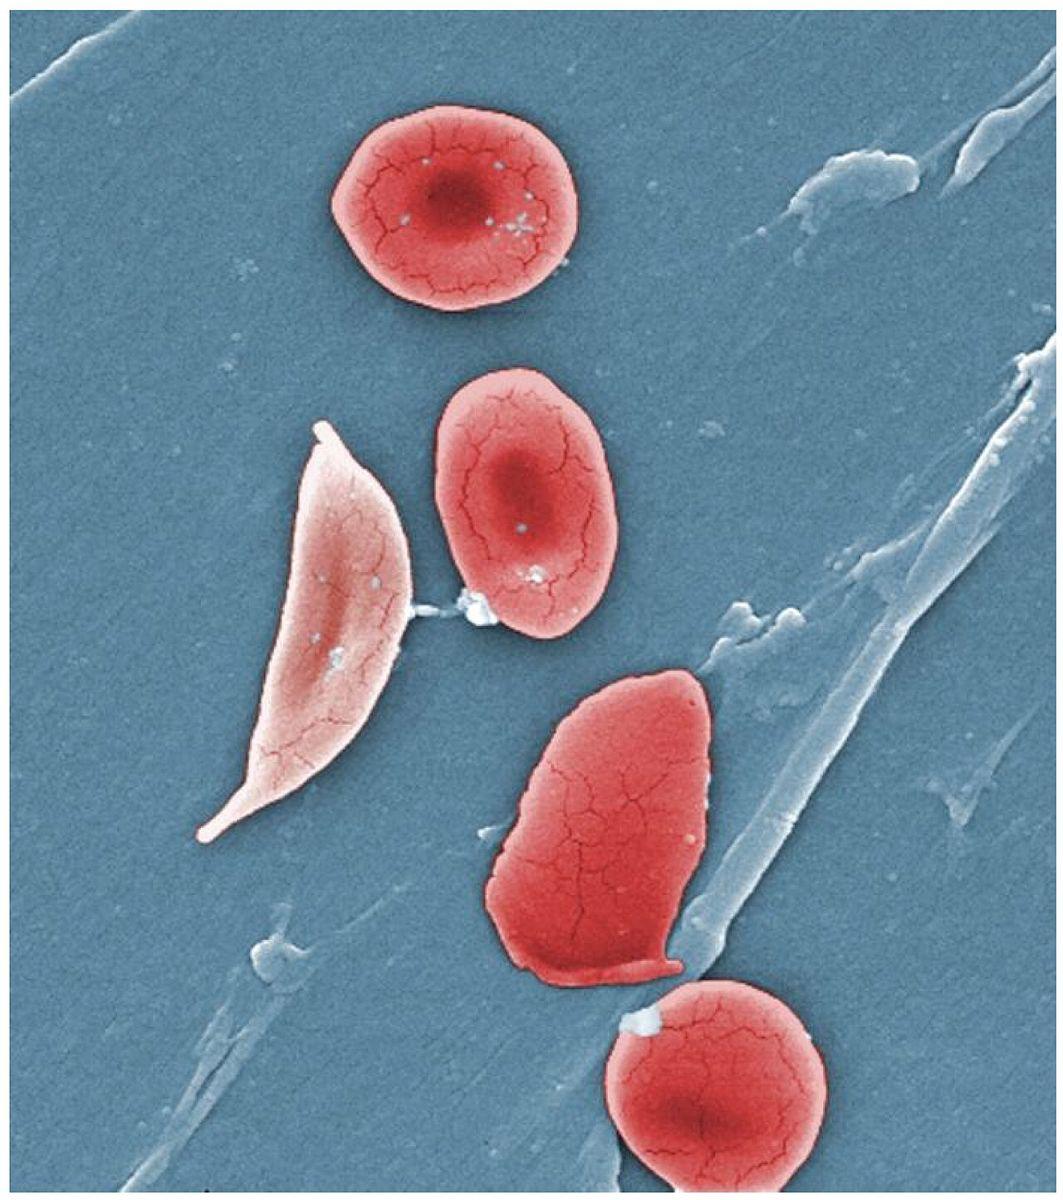
El botón de la mutación falciforme aplica la más famosa de todas: una A que se vuelve T en el codón 7, y un glutamato que se vuelve valina. (En la numeración tradicional es la posición 6, porque la metionina inicial se corta después de fabricar la cadena.) Una sola letra de tres mil millones. El glutamato tiene carga; la valina es hidrofóbica. Esa pequeña mancha hidrofóbica en la superficie hace que, con poco oxígeno, las hemoglobinas se peguen unas a otras en fibras que deforman el glóbulo rojo. Quien hereda dos copias tiene anemia falciforme; quien hereda una sola suele estar sano y, además, más protegido contra la malaria, que es una de las razones por las que la mutación es común donde la malaria lo fue. Una letra cambia una carga, la carga cambia cómo se pegan las moléculas, y eso cambia la vida de una persona y la historia de una población.
Una biblioteca que cabe en un núcleo
El genoma humano tiene unos tres mil cien millones de pares de bases por cada juego de cromosomas. Si cada base es una de cuatro letras igual de probables, vale bits, como se ve en entropía e información:
Es un techo, no la cifra exacta: el genoma tiene mucha repetición, y un buen compresor lo reduce bastante. Y solo un pedacito, del orden del uno o dos por ciento, codifica proteínas (unos veinte mil genes); el resto incluye regiones que regulan cuándo y cuánto se lee cada gen, y otras cuya función todavía se discute. Lo asombroso no es el tamaño, que hoy cabe en una memoria USB, sino la densidad: todo eso va enrollado en un núcleo de unas pocas milésimas de milímetro, y se copia entero cada vez que una de tus células se divide.
Visto desde la computación, la escena tiene un aire conocido: una cinta de símbolos, una máquina que la recorre de a tres y escribe otra cosa según una tabla fija. No es una máquina de Turing (el ribosoma no decide nada ni vuelve atrás), pero la analogía con lo que se cuenta en qué se puede computar ayuda a ver por qué los biólogos hablan, sin metáfora del todo, de información, de código y de lectura.
Formas que hacen cosas
Si tuviera que resumir el capítulo en una línea, diría que en las moléculas de la vida la química se vuelve geometría. La polaridad del agua decide qué se junta con qué. Un enlace α o β decide si algo es comida o madera. Una cabeza que ama el agua y una cola que la evita deciden que exista un adentro. Una secuencia de aminoácidos decide una forma, y la forma decide una función. Y una secuencia de cuatro letras, leída de a tres, decide la secuencia de aminoácidos.
Ninguna de estas moléculas está viva. Lo vivo empieza cuando se organizan dentro de una membrana y se ponen a trabajar juntas, y eso es lo que sigue en la célula como máquina, antes de llegar a la pregunta de fondo, qué es la vida.