Parte X · El cuerpo humano
Respiración
Se construye sobre: Corazón y circulación, Reacciones y energía química
Toma aire y aguántalo. Los primeros segundos no pasa nada. Luego empieza una incomodidad que crece, el diafragma da tirones, y en algún momento sueltas el aire aunque te hayas propuesto no hacerlo. Lo curioso es que, en ese momento, a tu sangre todavía le sobra oxígeno. Lo que te obligó a respirar fue otra cosa, y entender cuál lleva casi todo el capítulo.
“Respiración” nombra dos cosas que conviene separar. Una es la ventilación: mover aire hacia adentro y hacia afuera de los pulmones. La otra es la respiración celular: la reacción química, dentro de cada célula, que gasta oxígeno y fabrica dióxido de carbono. Entre las dos hay un viaje, y el vehículo es la sangre que mueve el corazón.
Un fuelle que funciona con presión
Los pulmones no se inflan solos; lo que se mueve es el recipiente. Al inspirar, el diafragma, una cúpula de músculo bajo los pulmones, se contrae y baja, y los músculos entre las costillas levantan la caja torácica. El volumen adentro aumenta y, como en cualquier gas a temperatura fija, la presión baja (ley de Boyle, ). Basta con que quede alrededor de un mmHg por debajo de la del aire de afuera para que el aire entre, empujado por la atmósfera. Al espirar en reposo no hace falta esfuerzo: el diafragma se relaja y el pulmón, elástico, se recoge como un globo.
En reposo mueves del orden de medio litro por respiración, unas doce a quince veces por minuto. Unos 150 mililitros de cada bocanada se quedan en la tráquea y los bronquios, que conducen pero no intercambian: el espacio muerto. Por eso respirar más hondo rinde más que respirar más rápido.
Un apartamento dentro del pecho
Los bronquios se bifurcan unas veintitrés veces hasta terminar en racimos de sacos diminutos, los alvéolos: del orden de 300 a 500 millones en un adulto, cada uno envuelto en capilares. Juntos suman una superficie de intercambio de 50 a 100 metros cuadrados, según la persona y el método: el área de un apartamento, plegada dentro del pecho. Y lo que separa el aire de la sangre es una barrera de apenas medio micrómetro.
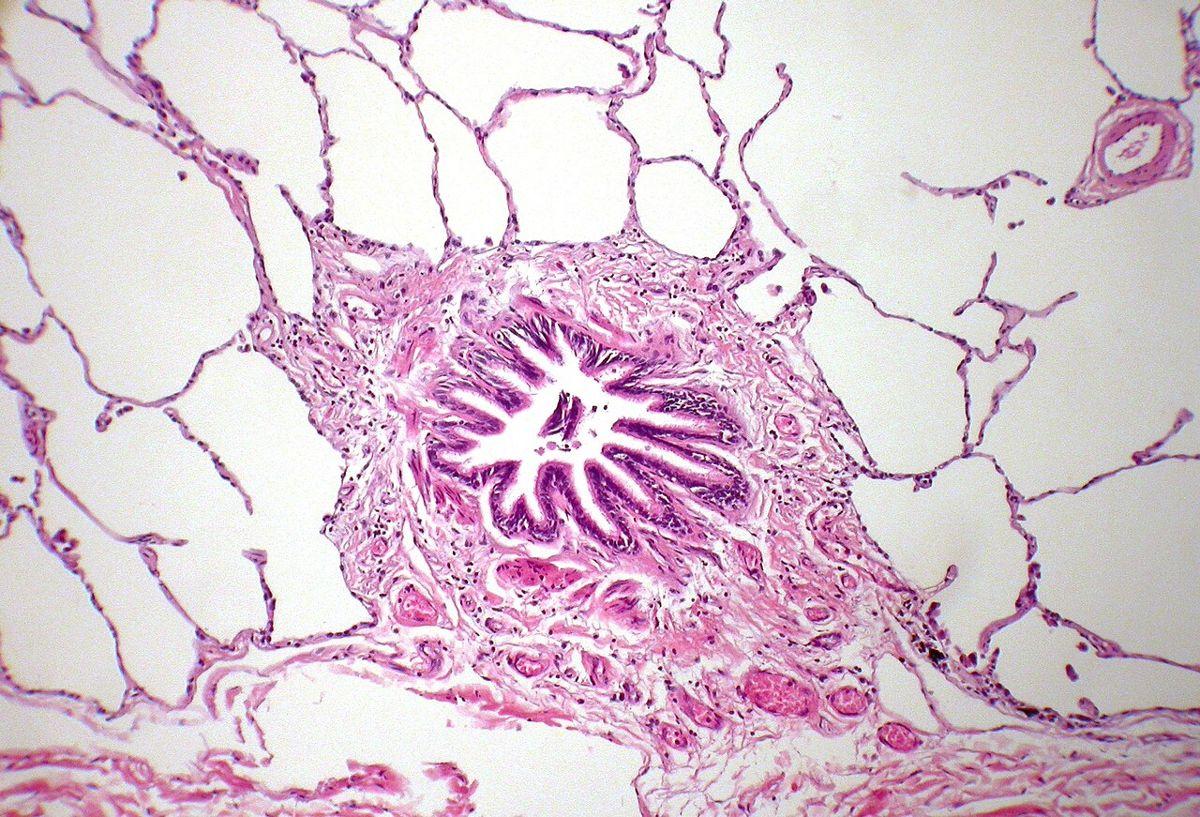
Recuerda la regla del capítulo anterior: el tiempo de difusión crece con el cuadrado de la distancia, así que a medio micrómetro el oxígeno cruza en una fracción de milisegundo. Un glóbulo rojo tarda en reposo unas tres cuartas partes de segundo en atravesar un capilar pulmonar y se equilibra con el aire más o menos en el primer tercio del recorrido: sobra margen. La ley de Fick dice que el flujo de gas es proporcional al área y a la diferencia de presión, e inversamente proporcional al grosor:
Es la versión fisiológica de un gradiente: el gas baja de donde su presión es alta a donde es baja, y el pulmón está diseñado para maximizar el área y minimizar el grosor. (Unos sacos tan pequeños y húmedos tenderían a colapsar por la tensión superficial del agua; no lo hacen porque el alvéolo fabrica un surfactante que la reduce, como el jabón en una burbuja.)
Presiones parciales
En una mezcla de gases, a cada uno le toca una presión parcial proporcional a su fracción (ley de Dalton). El aire seco tiene casi un 21 % de oxígeno, así que a nivel del mar, con 760 mmHg, el oxígeno aporta unos 159. Al entrar, el aire se humedece y el vapor de agua ocupa 47 mmHg: quedan unos 149. En el alvéolo se mezcla además con el CO₂ que sale de la sangre. La ecuación del gas alveolar, una aproximación estándar, lo estima así:
El 0,8 es el cociente respiratorio: cuántas moléculas de CO₂ salen por cada O₂ consumida, que depende de qué estés quemando (1 con azúcares, cerca de 0,7 con grasas). Unos 100 mmHg en el pulmón y unos 40 en la sangre que vuelve de los tejidos en reposo: esos son los dos números que hay que tener en la cabeza.
La hemoglobina y una curva en forma de S
El oxígeno se disuelve mal en agua: a 100 mmHg, el plasma lleva unos 0,3 mililitros por cada 100 de sangre. El truco es la hemoglobina, la proteína que llena los glóbulos rojos: cuatro cadenas, cada una con un grupo hemo con un átomo de hierro que puede llevar una molécula de O₂. Con unos 15 gramos por decilitro, la sangre arterial transporta cerca de 20 mililitros de oxígeno por cada 100, más de sesenta veces lo que lleva disuelto. Es una de las moléculas de la vida cuya forma es su función.
Lo interesante es cómo se carga. Si cada sitio atrapara oxígeno por su cuenta, la fracción ocupada seguiría una hipérbola, la misma forma de una enzima de Michaelis–Menten en la célula. Pero cuando un sitio se ocupa, la proteína cambia un poco de forma y a los demás les queda más fácil. Esa cooperatividad convierte la hipérbola en una sigmoide. A comienzos del siglo XX, Archibald Hill propuso describirla con dos parámetros:
es la fracción de sitios ocupados y la presión parcial de oxígeno. es la presión a la que la mitad están ocupados (en sangre adulta, unos 26 a 27 mmHg), y , el coeficiente de Hill, mide la cooperatividad: con sale la hipérbola; para la hemoglobina, el ajuste da , no 4, el máximo con cuatro sitios, porque la cooperación no es perfecta. Es un ajuste empírico más que un mecanismo (los modelos mecánicos vinieron después), pero en el rango que importa describe muy bien la curva real. Y si graficas contra sale una recta de pendiente : una función curva que se endereza al cambiar de escala, y así se mide un parámetro escondido.
En el alvéolo (nivel del mar, unos 99 mmHg según la ecuación del gas alveolar) la hemoglobina sale al 97 %. Si el tejido está en 40 mmHg, baja al 75 %: suelta el 22 % de su capacidad. Mueve el deslizador: arriba la curva es casi plana; entre 20 y 60 mmHg es empinada, y ahí cada mmHg suelta mucho oxígeno.
Mira los dos puntos. En el pulmón, a unos 100 mmHg, la hemoglobina sale al 97 %. En los tejidos en reposo, a 40, baja al 75 %: suelta algo más de una quinta parte de lo que lleva. Es poco, y es a propósito. Unos 4,7 mililitros de oxígeno entregados por cada 100 de sangre, por cinco litros por minuto, dan unos 235 mililitros por minuto, del orden de lo que consume un adulto en reposo. La sangre vuelve con tres cuartas partes de su carga: esa es la reserva para cuando un músculo trabaja.
La forma en S hace dos cosas a la vez. Arriba es casi plana: de 100 a 60 mmHg la saturación apenas cae de 97 a 90 %, así que la carga es robusta aunque el aire empeore. Entre 20 y 60 mmHg es empinada: ahí una caída pequeña de presión suelta mucho oxígeno, justo el rango de un tejido activo. Una hipérbola no puede hacer las dos cosas. La mioglobina, la prima de una sola cadena que guarda oxígeno en el músculo, tiene curva hiperbólica y un de unos 3 mmHg: a 20 mmHg sigue llena casi en un 90 %, cuando la hemoglobina está en un 31 %. Una guarda y la otra reparte.
El efecto Bohr: soltar donde se trabaja
Prende el botón del efecto Bohr. Un músculo que trabaja produce más CO₂, se vuelve más ácido y se calienta, y las tres cosas bajan la afinidad de la hemoglobina por el oxígeno: la curva se corre a la derecha. El efecto del CO₂ y la acidez es el efecto Bohr propiamente dicho, por Christian Bohr, que lo describió con sus colaboradores a comienzos del siglo XX; el calor empuja en la misma dirección. En la animación el pasa de 26,8 a 32 mmHg, un valor ilustrativo. La hemoglobina se carga en el pulmón con la curva normal, porque allí el CO₂ se va, y se descarga en el tejido con la curva corrida: a los mismos 40 mmHg ya no se queda en 75 % sino en 65 %, y la entrega sube de un 22 % a un 33 %, casi la mitad más. La molécula reparte más justo donde más se quema.
El CO₂, por su parte, viaja sobre todo como bicarbonato, gracias a una enzima de los glóbulos rojos, la anhidrasa carbónica, que acelera enormemente la reacción
un equilibrio químico de libro: en los tejidos, donde sobra CO₂, se corre a la derecha y produce ácido; en el pulmón, donde el CO₂ se escapa, a la izquierda. Mover CO₂ es mover ácido, así que respirar es también uno de los controles del pH de la sangre, una de esas cantidades que el cuerpo mantiene en un rango estrecho, como se cuenta en hormonas y homeostasis.
Por qué te ahoga el CO₂ y no la falta de O₂
Vuelvo a la apnea del principio. El ritmo de la respiración lo marcan neuronas del tronco del encéfalo, y lo ajustan sensores químicos. Los principales, en el bulbo raquídeo, no miden oxígeno: miden la acidez del líquido que los rodea, que depende del CO₂ que llega de la sangre. Al aguantar la respiración, el CO₂ sube rápido, y es esa señal la que se vuelve insoportable. Otros sensores, en las arterias del cuello, sí responden al oxígeno, pero con fuerza solo cuando la presión baja de unos 60 mmHg. La curva explica por qué tiene sentido: arriba de 60 la saturación casi no cambia y no hay de qué alarmarse. Cómo una neurona convierte señales en una orden para un músculo, como el diafragma, se cuenta en sistema nervioso.
Dos consecuencias, dichas como explicación general y no como consejo. Hiperventilar antes de aguantar la respiración baja el CO₂ y retrasa el aviso, pero casi no agrega oxígeno, porque la hemoglobina ya estaba llena; por eso en el buceo en apnea es peligroso: el oxígeno se puede agotar antes de que llegue la señal. Y el monóxido de carbono, que se pega a la hemoglobina cientos de veces más fuerte que el oxígeno, le quita capacidad de carga a la sangre sin subir el CO₂ ni bajar la presión parcial de oxígeno, y por eso puede intoxicar sin sensación de ahogo.
Al final del viaje: la mitocondria
¿Para qué tanto oxígeno? Para la otra respiración. La cuenta global (glucosa más seis O₂ dan seis CO₂ y seis aguas) está en reacciones químicas, y el motor de protones que recarga el ATP, en la célula. Lo que vale la pena añadir es el recorrido de los átomos, porque sorprende. La glucosa se parte primero en el citoplasma (la glucólisis, que rinde poco ATP y no necesita oxígeno), y sus pedazos entran a la mitocondria, donde una serie de reacciones, la principal de ellas un ciclo, el de Krebs, los desarma y les va quitando electrones. Los carbonos salen ahí, como CO₂, y los oxígenos de ese CO₂ vienen de la propia glucosa y del agua. El O₂ que respiraste entra solo al final, en la cadena de transporte de electrones: es el último en recibirlos, y al recibirlos se vuelve agua.
El oxígeno que inhalas termina como agua, y el CO₂ que exhalas es el esqueleto de carbono de lo que comiste. El cálculo moderno da unas 30 a 32 moléculas de ATP por glucosa (los libros antiguos decían 36 o 38). Y una consecuencia que suele sorprender: cuando el cuerpo quema grasa, la mayor parte de la masa que pierde sale por los pulmones, como CO₂; un cálculo publicado en 2014 en el BMJ la estimó en más de ocho de cada diez partes. De dónde viene esa grasa y cómo se decide qué se quema es tema de digestión y metabolismo.
Respirar en las montañas
Pereira está a unos 1.400 metros sobre el nivel del mar; Bogotá, a unos 2.600. El aire tiene en todas partes un 21 % de oxígeno, pero la presión total baja con la altura, y con ella la parcial. Con la atmósfera estándar y la ecuación del gas alveolar, suponiendo que se respira igual que a nivel del mar, en Pereira salen unos 642 mmHg de presión, 124 de oxígeno inspirado y unos 75 en el alvéolo, que en la curva de Hill dan 94 % de saturación. En Bogotá, unos 553 mmHg, 106 inspirados y unos 56 en el alvéolo: 88 %. Son números de un modelo, no mediciones, pero muestran el patrón: prueba los botones de la animación y verás el punto del pulmón bajar hacia la parte empinada.
El cuerpo responde. En horas, los sensores del cuello detectan la baja de oxígeno y aumentan la ventilación, que saca más CO₂ del alvéolo y le deja espacio al oxígeno: con 33 mmHg de CO₂ en vez de 40, la presión de oxígeno en Bogotá sube a unos 65 mmHg y la saturación del modelo, a 92 %. Pero sacar CO₂ es sacar ácido, y en los días siguientes los riñones lo compensan eliminando bicarbonato. Los glóbulos rojos fabrican más 2,3-bisfosfoglicerato, que corre la curva a la derecha. Y los riñones sueltan, ya desde los primeros días, la hormona eritropoyetina, que estimula la producción de glóbulos rojos; en semanas se nota: quien vive a esa altura suele tener algo más de hemoglobina que quien vive en la costa.
Bogotá está cerca de la altura a partir de la cual el mal de altura se vuelve frecuente en viajeros que llegan de abajo. En la cumbre del Everest la presión es más o menos un tercio de la del nivel del mar, y aun así, desde 1978, hay quien ha subido sin oxígeno embotellado, al borde de lo que la curva permite.
Todo esto es una manera de mantener algo lejos del equilibrio: una diferencia de presión de oxígeno entre el aire y la mitocondria, sostenida minuto a minuto, que alimenta la represa de protones que recarga el ATP. Si dejas de respirar, en pocos minutos esa diferencia se borra. Por qué la vida consiste en sostener ese tipo de desequilibrios, a contracorriente de la segunda ley, es la pregunta de qué es la vida.