Parte X · El cuerpo humano
Sistema inmune
Se construye sobre: La célula como máquina, Moléculas de la vida
Piensa en el sarampión. Quien lo tuvo de niño, o quien recibió la vacuna, casi nunca vuelve a enfermar de sarampión, aunque décadas después se siente al lado de alguien que lo tiene. El virus es el mismo; la persona es la misma. Lo único que cambió es que el cuerpo ya lo vio una vez. De algún modo guardó una descripción de un enemigo que no conocía, y la guardó durante años en un tejido que se renueva sin parar.
El sistema inmune resuelve un problema que parece imposible: tiene que reconocer moléculas que nunca ha visto, de microbios que evolucionan más rápido que nosotros, sin atacar los treinta billones de células propias que lo rodean. Este capítulo es sobre cómo lo hace, y la respuesta corta es sorprendente: no lo diseña; lo selecciona.
Primero, las murallas
La mayoría de los microbios no llegan a enfrentarse con nada que merezca llamarse inmunidad. La piel es una pared de células muertas, seca y un poco ácida. Las mucosas, la de la nariz, los pulmones o el intestino, están cubiertas de moco que atrapa partículas y, en las vías respiratorias, de cilios que lo barren hacia afuera. Las lágrimas y la saliva llevan enzimas que rompen las paredes de ciertas bacterias. El ácido del estómago esteriliza buena parte de lo que comes, como se cuenta en digestión y metabolismo. Y los microbios inofensivos que ya viven en tu piel y tu intestino ocupan el sitio y los recursos que necesitaría un invasor.
La respuesta innata: reconocer lo que todos los microbios tienen
Cuando algo cruza la muralla, por una cortada por ejemplo, responde primero la inmunidad innata, la que naces con ella. Su arma más antigua son los fagocitos, células que literalmente se comen a los intrusos: los envuelven con su membrana, los encierran en una burbuja y los disuelven con enzimas. Los macrófagos montan guardia en los tejidos; los neutrófilos llegan en masa desde la sangre en cuestión de horas.
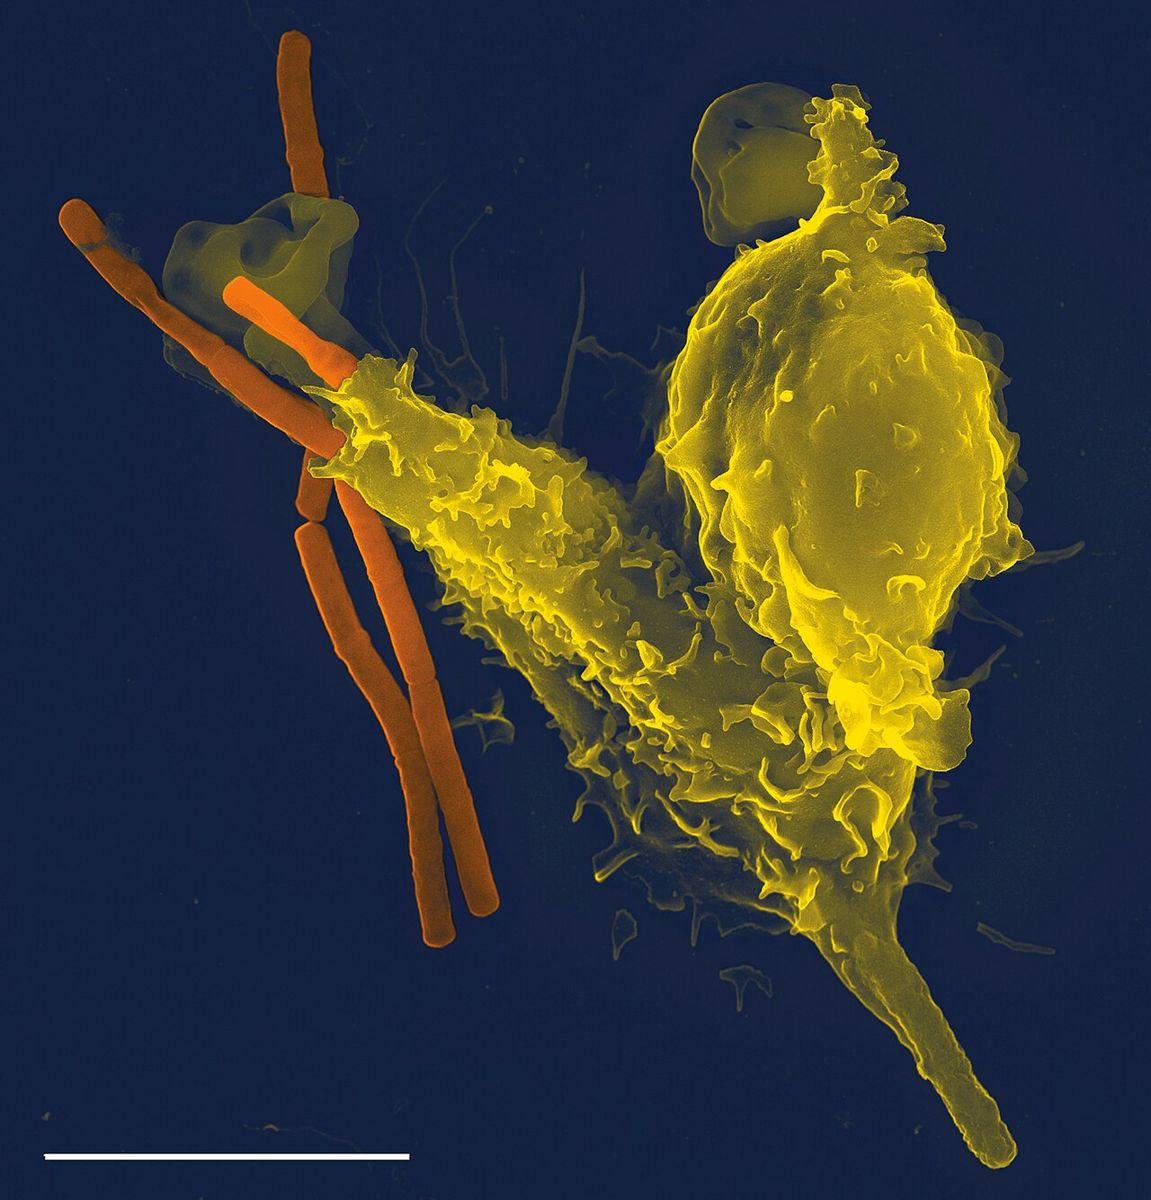
¿Cómo saben qué comerse? Tienen receptores para formas moleculares que comparten grupos enteros de microbios y que las células animales no tienen: ciertos componentes de las paredes de las bacterias, el ARN de doble hebra típico de muchos virus, la proteína de los flagelos. Son pocos receptores, codificados directamente en el genoma, que reconocen firmas de familia y no individuos. Por eso la respuesta innata es rápida, pero poco específica, y no mejora con la experiencia.
Al detectar al intruso, esas células sueltan mensajeros químicos que provocan la inflamación. Los vasos de la zona se dilatan y se vuelven más permeables: llega más sangre (de ahí el enrojecimiento y el calor), sale líquido hacia el tejido (la hinchazón) y se sensibilizan los nervios (el dolor). No es una falla: es la manera de abrir la puerta para que lleguen refuerzos desde la circulación. Si la señal es fuerte, los mensajeros llegan al cerebro y suben el termostato del cuerpo: la fiebre, una de las regulaciones que se cuentan en hormonas y homeostasis.
La respuesta adaptativa: una llave para cada cerradura
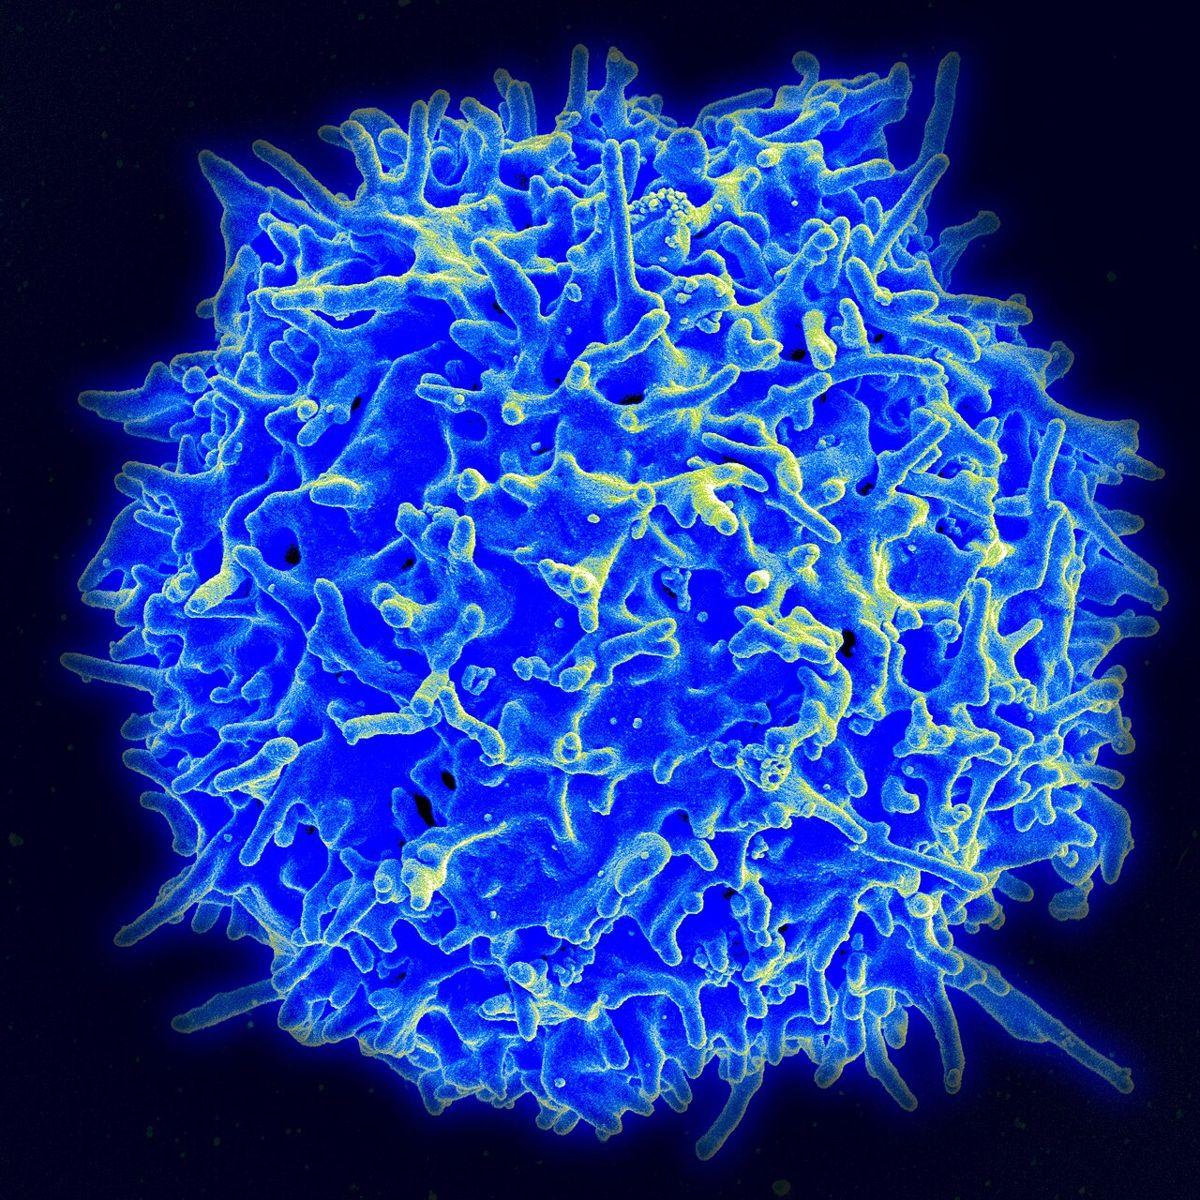
La innata contiene, pero muchas veces no basta. Unos días después entra la inmunidad adaptativa, que hace algo cualitativamente distinto: reconoce individuos, una molécula concreta de un microbio concreto, y la recuerda. Sus protagonistas son los linfocitos, de dos clases. Los linfocitos B fabrican anticuerpos. Los linfocitos T hacen otras cosas: unos, los citotóxicos, matan células propias que están infectadas; otros, los auxiliares, coordinan la respuesta y dan permiso a los B para producir a gran escala.
Un anticuerpo es una proteína en forma de Y, hecha de cuatro cadenas: dos pesadas y dos livianas. El tronco de la Y es casi igual en todos los anticuerpos de una misma clase; las puntas de los brazos son variables, y ahí está todo. Cada punta tiene un relieve de cargas, bolsillos y salientes que encaja con un pedacito de otra molécula, el epítopo, como una llave con su cerradura. Es la misma lección de las moléculas de la vida y del sitio activo de las enzimas en la célula: la función la decide la forma. Un anticuerpo pegado a un virus puede bloquear la parte con que el virus se engancha a tus células; pegado a una bacteria, la marca para que los fagocitos se la coman mejor.
Los linfocitos T reconocen de otra manera, y la diferencia importa. Su receptor no ve el microbio entero, sino pedacitos de sus proteínas que las células exhiben en la superficie montados en unas moléculas de presentación (el sistema que los médicos llaman MHC o HLA, el mismo que hay que emparejar en los trasplantes). Casi todas las células con núcleo están, todo el tiempo, mostrando muestras de lo que tienen adentro. Si entre las muestras aparece algo de un virus, un T citotóxico que lo reconozca destruye esa célula.
Cómo fabricar llaves para cerraduras que no conoces
Aquí está el problema de fondo. Tienes del orden de veinte mil genes que codifican proteínas. Los microbios posibles, y las formas que pueden tener sus moléculas, son incontables. No puede haber un gen por anticuerpo.
La solución es combinatoria. El gen de la cadena pesada de un anticuerpo no viene armado: viene en segmentos, y cada linfocito B, mientras madura, corta y pega al azar uno de cada tipo. En humanos hay, como orden de magnitud, unas decenas de segmentos de un tipo (V), unos veinte o treinta de otro (D) y seis de un tercero (J). La cadena liviana hace lo mismo con dos tipos de segmentos. Contando con números redondos:
Es el principio de multiplicación de la probabilidad: elecciones independientes se multiplican. Y eso es solo el principio. Las uniones entre segmentos son imprecisas: la maquinaria quita y añade letras al azar en cada empalme, y esa sola imprecisión multiplica el repertorio posible por muchos órdenes de magnitud. Las estimaciones del repertorio potencial llegan a y bastante más, aunque una persona, en un momento dado, solo tiene una fracción de esas llaves en circulación, porque tiene un número finito de linfocitos. Los receptores de los T se arman con el mismo truco. Que este mecanismo de recombinación existe lo demostró el trabajo de Susumu Tonegawa, que recibió por él el Nobel de Medicina en 1987.
Visto con los ojos de la entropía y la información, es una idea extraña y profunda: el cuerpo no guarda en el genoma las respuestas, sino un generador de respuestas al azar. Cada linfocito lleva un solo tipo de receptor, distinto del de casi todos los demás, y lo fabricó antes de encontrarse con nada.
Selección clonal y memoria
Si las llaves se fabrican al azar y antes de conocer las cerraduras, ¿cómo se usan? Por selección. La idea, que se conoce como selección clonal y tomó forma a finales de los años cincuenta (el nombre más asociado a ella es el de Frank Macfarlane Burnet), es esta: entre millones de linfocitos distintos, alguno tendrá por casualidad un receptor que encaja, aunque sea más o menos, con el intruso. Ese linfocito, al encajar y recibir las señales de apoyo adecuadas, se activa y se divide una y otra vez. De una célula salen miles de copias idénticas, un clon, todas con la misma llave.
Es la selección natural de qué es la vida, corriendo dentro de ti y en cuestión de días: variación al azar, selección por lo que funciona, multiplicación de lo seleccionado. Y tiene una segunda vuelta. En los ganglios linfáticos, los B activados mutan a propósito, con mucha frecuencia, justo la región de sus genes que codifica la punta del anticuerpo; los que salen con una llave que encaja mejor reciben más señales de supervivencia, y los demás mueren. Semana a semana, los anticuerpos se vuelven más afines. Es evolución darwiniana con un objetivo puesto por el antígeno.
La mayoría de las células del clon son de vida corta: hacen su trabajo y mueren cuando la infección pasa. Pero una parte se queda como células de memoria, de vida larga, y algunas células productoras de anticuerpos se instalan en la médula ósea y siguen fabricando por mucho tiempo. La próxima vez que llegue el mismo antígeno, el punto de partida ya no es un linfocito entre millones, sino una población grande de linfocitos que ya fueron seleccionados y mejorados.
Primaria: pico el día 12, nivel 1,0. Segunda exposición el día 60: pico 5,0 días después, nivel 10,0, unas 10 veces el de la primaria. Modelo de juguete: los días y las alturas son ilustrativos.
La animación es un modelo de juguete: cada respuesta es una onda que arranca tras un retraso, sube y decae, y los números son ilustrativos, no datos. Con la segunda exposición en el día 60, la respuesta primaria llega a su pico el día 12 con nivel 1, y la secundaria, solo 5 días después de la exposición, con nivel 10. En la realidad la proporción varía mucho con el antígeno, y a menudo es de un orden de magnitud o más; por eso estas curvas se dibujan casi siempre en escala logarítmica, que convierte multiplicar por diez en subir un escalón fijo (prueba el botón). Ahora mueve la segunda exposición muy cerca de la primera. En el juguete, la memoria tarda dos semanas en formarse; con la segunda exposición en el día 10, la respuesta llega solo a un nivel de 6,3, y en el día 3, a uno de 2,0, que es casi la suma de dos primarias. La memoria no es instantánea: se construye durante la primera respuesta. En el cuerpo real, además, la segunda respuesta cambia de calidad, no solo de cantidad: domina otra clase de anticuerpo y llega con la afinidad ya mejorada.
Por qué funcionan las vacunas
Una vacuna es una primera exposición sin la enfermedad. Le muestra al sistema inmune la forma del enemigo, sin el enemigo funcional: un virus o una bacteria inactivados, o debilitados, o solo una de sus proteínas, o las instrucciones genéticas para que tus propias células fabriquen esa proteína durante un tiempo, que es lo que hacen las vacunas de ARN mensajero. El sistema hace lo de siempre: selecciona, multiplica, mejora y guarda memoria. Cuando llega el microbio real, lo recibe una respuesta secundaria. Por eso algunas vacunas necesitan varias dosis: cada exposición agranda y afina la memoria. Y por eso algunas necesitan refuerzos periódicos o actualizarse: la memoria no dura lo mismo para todos los antígenos, y microbios como el de la gripa cambian las formas de su superficie hasta que las llaves viejas dejan de encajar bien.
Hay además un efecto de población. Si cada persona infectada contagia en promedio a personas en una población sin defensas, y una fracción es inmune, cada contagio produce en promedio contagios nuevos. La epidemia se apaga cuando ese número baja de uno:
Es una función sencilla con consecuencias enormes. Para un virus con , basta con la mitad inmune; para el sarampión, que es de los más contagiosos que se conocen y suele citarse con un de entre 12 y 18, hace falta entre el 92 y el 94 %. Es un modelo simplificado, que supone mezcla homogénea y una inmunidad que bloquea el contagio, pero explica por qué con el sarampión se habla de coberturas tan altas.
Lo propio y lo ajeno
Si los receptores se fabrican al azar, muchos van a encajar con moléculas propias. ¿Por qué no te atacas? Porque hay una segunda selección, en sentido contrario, antes de que los linfocitos salgan a circular. Los T maduran en el timo, un órgano detrás del esternón, y ahí se les presentan muestras de proteínas propias, incluidas muchas que normalmente solo existen en otros órganos. Los que reaccionan con fuerza contra lo propio reciben la orden de morir. Los B pasan por un filtro parecido en la médula ósea. Y los que se escapan del filtro son frenados después, en los tejidos, por otros mecanismos, entre ellos una clase de linfocitos T reguladores cuyo trabajo es calmar respuestas.
“Propio contra ajeno” es, de todos modos, una simplificación útil. El sistema inmune tolera a billones de bacterias en el intestino, que son ajenas, y tolera al feto durante el embarazo, que es en parte ajeno. Y reacciona contra células propias cuando están dañadas o infectadas. Algunas lecturas, como el “modelo de peligro” propuesto por Polly Matzinger, sostienen que lo que dispara una respuesta es sobre todo la señal de daño, y no tanto la novedad; la visión más extendida hoy combina las dos cosas: reconocer una forma y, además, recibir la señal de que hay un problema.
Cuando falla
Autoinmunidad. A veces la tolerancia se rompe y el sistema ataca algo propio. En la diabetes tipo 1, los linfocitos T destruyen las células del páncreas que fabrican insulina, la hormona que en el metabolismo ordena guardar glucosa. En la esclerosis múltiple, el blanco es la mielina que aísla las fibras nerviosas del sistema nervioso. Hay genes que aumentan el riesgo y factores ambientales que lo disparan, y en muchos casos el detonante exacto todavía no se conoce.
Alergias. Otras veces el sistema responde con toda su fuerza contra algo inofensivo: polen, ácaros, el maní. En la alergia típica intervienen anticuerpos de una clase particular, la IgE, que se pegan a unas células llenas de histamina y otras sustancias inflamatorias. Al volver a encontrar el alérgeno, esas células se vacían de golpe. Es memoria inmunológica funcionando bien contra el blanco equivocado; en su forma más grave, cuando la reacción se extiende por todo el cuerpo, la anafilaxia, es una emergencia médica.
Cáncer. El caso más sutil. Un cáncer está hecho de células propias que, como se cuenta en qué es la vida, acumularon mutaciones y dejaron de cooperar. Esas mutaciones tienen una consecuencia inmunológica: algunas producen proteínas alteradas que, mostradas en la superficie, ya no se ven del todo propias. El sistema inmune detecta y elimina así una parte de las células que empiezan a transformarse; es la idea de la vigilancia inmunológica. Los tumores que llegan a crecer son, en buena medida, los que lograron escapar a esa vigilancia: dejaron de mostrar sus muestras, se rodearon de señales que calman a los linfocitos o activaron los frenos naturales que el sistema usa para no atacar lo propio. Evadir la destrucción inmune aparece de hecho en la lista de rasgos distintivos del cáncer que Douglas Hanahan y Robert Weinberg actualizaron en 2011, una lista que organiza muchos cursos de biología del cáncer. Y es otra vez selección: dentro del tumor, las células que se esconden mejor dejan más descendientes.
Entender esos frenos cambió el tratamiento de algunos cánceres. Los medicamentos llamados inhibidores de puntos de control bloquean frenos como CTLA-4 o PD-1 y le devuelven al sistema inmune la capacidad de atacar el tumor; por ese trabajo, James Allison y Tasuku Honjo recibieron el Nobel de Medicina en 2018. Conviene decirlo con su tamaño real: en algunos tipos de cáncer y en una parte de los pacientes la respuesta es muy buena y duradera, en muchos otros es pequeña o nula, y soltar los frenos tiene un precio, porque puede desatar reacciones contra tejidos sanos. Es el mismo equilibrio entre atacar y tolerar de todo el capítulo, ahora en manos de la medicina.
Un sistema que aprende
Me impresiona que la solución a un problema de reconocimiento imposible no sea un catálogo, sino un proceso: fabricar diversidad al azar, eliminar lo que reconoce lo propio, multiplicar lo que reconoce al intruso, refinarlo por mutación y selección, y guardar lo que funcionó. Es lo que hace la evolución con las especies, y es, en otra escala y con otras piezas, lo que se intenta en el aprendizaje automático: sistemas que no llegan sabiendo, sino que se ajustan a los ejemplos que encuentran, y que también pueden equivocarse de blanco. El sistema inmune es el capítulo en que el cuerpo deja de ser una máquina que se mantiene y se vuelve una que aprende. (Y, como todo en esta parte, es una explicación general, no un consejo médico.)