Parte X · El cuerpo humano
Corazón y circulación
Se construye sobre: La célula como máquina, Energía
Pon dos dedos a un lado del cuello, debajo de la mandíbula, y espera. Ahí está: un golpecito, otro, otro. Lo más probable es que cuentes entre sesenta y cien por minuto. Ese golpe no es el corazón; es la onda de presión que el corazón acaba de mandar por una arteria, y que llega a tus dedos una fracción de segundo después de cada latido.
La pregunta de este capítulo es por qué hace falta eso. Una bacteria no tiene corazón ni sangre, y le va perfectamente. Tú tienes unos treinta billones de células, como se contó en la célula, y cada una necesita oxígeno y glucosa y necesita deshacerse de su dióxido de carbono. La respuesta está en una cuenta sencilla, y lo que sale de ella es una bomba, unas tuberías y una presión: un circuito.
Por qué difundir no alcanza
Las moléculas en un líquido se mueven al azar, chocando con todo, y si sueltas oxígeno en un punto se va esparciendo solo: eso es la difusión. Lo crucial es cómo crece la distancia recorrida. Como cada paso es al azar, el tiempo no crece en proporción a la distancia sino a su cuadrado:
Aquí es el coeficiente de difusión; para el oxígeno en agua es del orden de . Con ese número, cruzar diez micrómetros (el tamaño de una célula) toma unos 25 milisegundos. Un milímetro, unos cuatro minutos. Un centímetro, unas siete horas. Un metro, unos ocho años. Esa función cuadrática es una sentencia: la difusión es excelente a escala de una célula e inútil a escala de un cuerpo. Los seres pequeños y planos se las arreglan sin circulación; los grandes tienen que transportar en vez de esperar.
La solución es mover el líquido entero, y dejarle a la difusión solo el último tramo, donde es rápida. Los capilares, los vasos más finos, miden entre cinco y diez micrómetros de diámetro, tan estrechos que los glóbulos rojos pasan en fila y deformándose, y casi ninguna célula del cuerpo queda a más de una décima de milímetro de uno.
Dos bombas en serie
El corazón es un músculo hueco del tamaño aproximado de un puño, y en realidad son dos bombas pegadas. La mitad derecha recibe la sangre que vuelve del cuerpo, pobre en oxígeno, y la empuja hacia los pulmones: la circulación pulmonar. Allí la sangre suelta CO₂ y se carga de oxígeno (el tema de respiración), y vuelve a la mitad izquierda, que la empuja al resto del cuerpo: la circulación sistémica. Una vuelta completa pasa dos veces por el corazón.
Cada mitad tiene dos cámaras: arriba una aurícula, de pared delgada, que recibe; abajo un ventrículo, de pared gruesa, que empuja. Y hay cuatro válvulas: la tricúspide y la mitral entre aurícula y ventrículo, la pulmonar y la aórtica a la salida. No tienen motor ni nervios: se abren y se cierran pasivamente según de qué lado haya más presión. En el lenguaje de los circuitos son diodos, que dejan pasar la corriente en un solo sentido.
Que las dos bombas estén en serie tiene una consecuencia que no es obvia: en promedio tienen que bombear casi exactamente lo mismo (la pequeña diferencia es sangre que llega al lado izquierdo por un atajo, sin acumularse en ningún lado). Si la derecha mandara apenas un uno por ciento más, unos 50 mililitros por minuto, en diez minutos habría medio litro de sangre de más en los pulmones, que normalmente contienen más o menos eso. Es la primera ley de Kirchhoff de los circuitos: lo que entra a un nodo es lo que sale. El corazón la cumple sin controlador central gracias al mecanismo de Frank–Starling: mientras más se llena y se estira un ventrículo, con más fuerza se contrae, así que el lado al que le llega más sangre empuja más, y el desbalance se corrige solo.
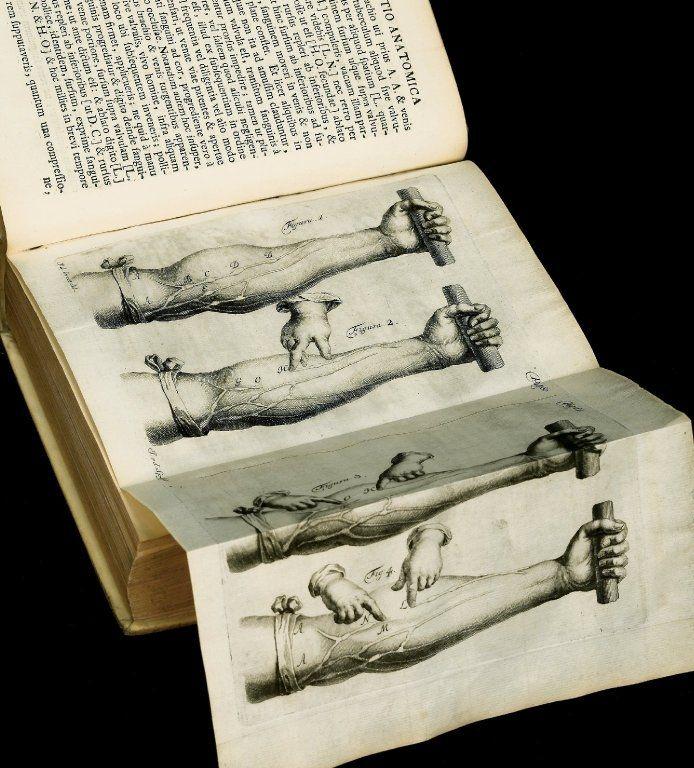
Que esto sea un circuito cerrado tuvo que demostrarse. William Harvey lo argumentó en 1628 en parte con aritmética: multiplicó una estimación de lo que expulsa el corazón en cada latido por el número de latidos y obtuvo, en poco tiempo, mucha más sangre de la que un cuerpo podría fabricar. La única salida era que fuera siempre la misma sangre, dando vueltas.
Un latido, paso a paso
El ciclo cardíaco tiene dos tiempos. En la diástole el ventrículo, relajado, se llena desde la aurícula, que al final se contrae y le da un último empujón. En la sístole el ventrículo se contrae: la presión adentro supera la de la aurícula y la válvula de entrada se cierra; por un instante todo está cerrado y la presión sube sin que salga nada; cuando supera la de la arteria, la válvula de salida se abre y la sangre sale. Al relajarse, la presión cae, la válvula de salida se cierra y vuelta a empezar. El “lub-dub” del estetoscopio son esos dos cierres.
En reposo, un ventrículo izquierdo adulto se llena hasta unos 120 mililitros y expulsa más o menos 70 por latido, el volumen sistólico. Por la frecuencia, sale el gasto cardíaco:
Unos cinco litros por minuto, que es más o menos toda la sangre de un adulto: en reposo, tu sangre da una vuelta cada minuto. Con ejercicio intenso el gasto puede multiplicarse por cuatro o cinco. En un día son del orden de cien mil latidos y siete mil litros.
Qué significa 120/80
En medicina la presión se sigue midiendo en milímetros de mercurio, mmHg, la presión que sostiene una columna de mercurio de esa altura; un mmHg son unos 133 pascales. Los dos números son la presión en las arterias grandes en dos momentos: el máximo, durante la sístole (120), y el mínimo, justo antes del siguiente latido (80). Y son presiones por encima de la atmosférica. En agua, casi catorce veces menos densa que el mercurio, 120 mmHg equivalen a una columna de algo más de 1,6 metros: hasta ahí subiría la sangre por un tubo vertical conectado a una arteria.
¿Por qué no cae a cero entre latidos? Porque la aorta es elástica. En cada sístole se estira y guarda parte de la sangre; en la diástole se recoge y la sigue empujando. Es lo que hace un condensador en paralelo con una resistencia: convierte un flujo a pulsos en una presión que oscila alrededor de un promedio. Ese modelo, el Windkessel, se formalizó a finales del siglo XIX y sigue siendo la primera aproximación que se usa. (Qué se considera presión alta depende de la guía clínica, que suele poner el umbral en 130/80 o en 140/90; aquí la cuento como física, no como diagnóstico.)
La ley de Ohm de la sangre
La analogía con la electricidad no es una imagen: las ecuaciones son las mismas. La diferencia de presión hace de voltaje, el caudal de corriente, y los vasos oponen una resistencia vascular:
Con una presión arterial media de unos 93 mmHg (más cerca de la mínima, porque la diástole dura más), unos 3 mmHg de llegada al corazón y 5 litros por minuto, la resistencia sistémica sale de unos 18 mmHg·min/L. La pulmonar mueve el mismo caudal con mucha menos presión y tiene del orden de diez veces menos resistencia; por eso el ventrículo derecho tiene la pared más delgada. Los órganos, además, están casi todos en paralelo: cada uno recibe su propio ramal desde la misma presión y regula su flujo por su cuenta, como cada aparato de una casa toma la corriente que necesita sin apagar a los demás.
La cuarta potencia del radio
¿De qué depende la resistencia de un tubo? Hacia 1840, Gotthilf Hagen y el médico Jean Poiseuille, cada uno por su lado, llegaron a la misma ley. Para un fluido de viscosidad que fluye sin turbulencia por un tubo de radio y longitud :
La cuarta potencia sale de dos efectos que se multiplican. El líquido pegado a la pared no se mueve y el del centro va más rápido: la velocidad dibuja una parábola, , cuyo máximo crece con . Y el caudal es esa velocidad sumada sobre toda la sección, que también crece con . Sumar anillo por anillo es una integral:
Con el radio normal, el flujo solo cambia en proporción a la presión y al revés de la longitud: duplicar el largo lo parte en dos. Las flechas son la velocidad de la sangre: cero junto a la pared, máxima en el centro.
Baja el radio a la mitad: el flujo cae al 6 %, dieciséis veces menos, y para recuperarlo habría que empujar con dieciséis veces la presión. Con el radio al 80 % pasa un 41 %; al 90 %, un 66 %. Si el flujo dependiera del radio o del área, un estrechamiento moderado apenas se notaría; con la cuarta potencia se nota muchísimo. La longitud y la presión, en cambio, entran sin potencias.
Eso hace del radio la perilla principal de la circulación. Las arteriolas, las ramas pequeñas justo antes de los capilares, tienen músculo en la pared y concentran la mayor parte de la resistencia. Para cambiar el flujo de un órgano no hace falta tocar el corazón: un 19 % más de radio y el flujo se duplica. Las órdenes vienen del sistema nervioso autónomo, de hormonas como la adrenalina y de los propios tejidos que, cuando trabajan, sueltan sustancias que dilatan sus vasos; y que todo eso se coordine con lazos de retroalimentación, como los que se cuentan en hormonas y homeostasis, es otra historia.
Dos honestidades. Poiseuille supone un tubo rígido y largo, flujo estacionario y un fluido simple, y la sangre, una suspensión de células que llega a pulsos por vasos elásticos, no es nada de eso del todo: es una aproximación, buena para la forma de la dependencia. Y un estrechamiento localizado no es un vaso entero más fino. Si solo el 10 % del largo queda con la mitad del radio, las dos partes se suman como resistencias en serie, veces la original, y el flujo cae al 40 %, no al 6 %. Por eso una placa en una arteria puede crecer bastante antes de notarse en reposo, y por eso, cuando avanza, el efecto se acelera.
El marcapasos que no necesita cerebro
¿Quién le dice al corazón cuándo latir? Él mismo. En la pared de la aurícula derecha hay un grupo pequeño de células, el nodo sinusal, sin voltaje de reposo estable. Como todas las células, mantienen una diferencia de potencial a través de la membrana, negativa por dentro, hecha con las bombas y canales de iones de la célula. Pero en estas, ciertos canales dejan entrar carga positiva poco a poco, y el voltaje sube despacio, de unos −60 milivoltios hacia unos −40. En ese umbral se abren otros canales, el voltaje se dispara y la célula descarga; luego se recupera y la rampa vuelve a empezar. Es un oscilador: un reloj que se da cuerda solo.
La descarga recorre las aurículas, que se contraen, y llega a un segundo nodo que la retrasa una décima de segundo, lo justo para que los ventrículos terminen de llenarse; después baja por fibras especializadas y se reparte por los ventrículos. Sin influencias externas, el nodo sinusal late a unos cien por minuto. El sistema nervioso no crea el ritmo; lo frena o lo acelera, y un corazón trasplantado, que llega sin sus nervios, sigue latiendo por su cuenta. Como cada descarga mueve carga a través de millones de membranas a la vez, el corazón entero produce un campo eléctrico que se mide desde la piel: un electrocardiograma registra diferencias de voltaje del orden de un milivoltio que dibujan, latido a latido, cómo viaja la señal.
Cuánto cuesta
El trabajo de una bomba es presión por volumen. Con unos 93 mmHg y 70 mililitros, cada latido del ventrículo izquierdo hace del orden de 0,87 julios, y a setenta latidos por minuto eso es un poco más de un vatio de potencia mecánica. Comparado con los cerca de cien vatios que cuesta vivir (la cuenta está en energía), parece una ganga. Pero el músculo cardíaco, como todo motor, convierte en trabajo solo una fracción de lo que gasta y el resto se vuelve calor, como manda la termodinámica; su consumo real es varias veces mayor, y no descansa nunca.
La sangre lleva casi todo: la glucosa y las grasas que vienen de la digestión, las hormonas, el calor, las células del sistema inmune patrullando. Pero la razón de fondo es la cuenta del principio: en un cuerpo grande, la distancia mata a la difusión, y hay que mover el líquido. El siguiente capítulo sigue al oxígeno en la parte del viaje que más importa: cómo se sube a la hemoglobina y cómo se baja justo donde hace falta.