Parte X · El cuerpo humano
Sistema nervioso
Se construye sobre: La célula como máquina, Carga, campo y voltaje, Circuitos
Agarras una olla sin saber que estaba caliente y la mano se te suelta sola. Un instante después llega el dolor, y solo entonces piensas “quemaba”. En ese orden: primero el movimiento, después la sensación, al final la palabra. Algo en ti decidió antes de que tú decidieras, y lo hizo con electricidad.
Ese reflejo es un circuito corto: un sensor en la piel, un cable hasta la médula espinal, unas pocas conexiones allí y otro cable de vuelta al músculo. El cerebro se entera por una ruta paralela, un poco más larga. Este capítulo es sobre las piezas de ese circuito, que son células, y sobre cómo unas células hechas de agua salada consiguen mandar señales eléctricas a un metro de distancia en una centésima de segundo.
Una célula con cables
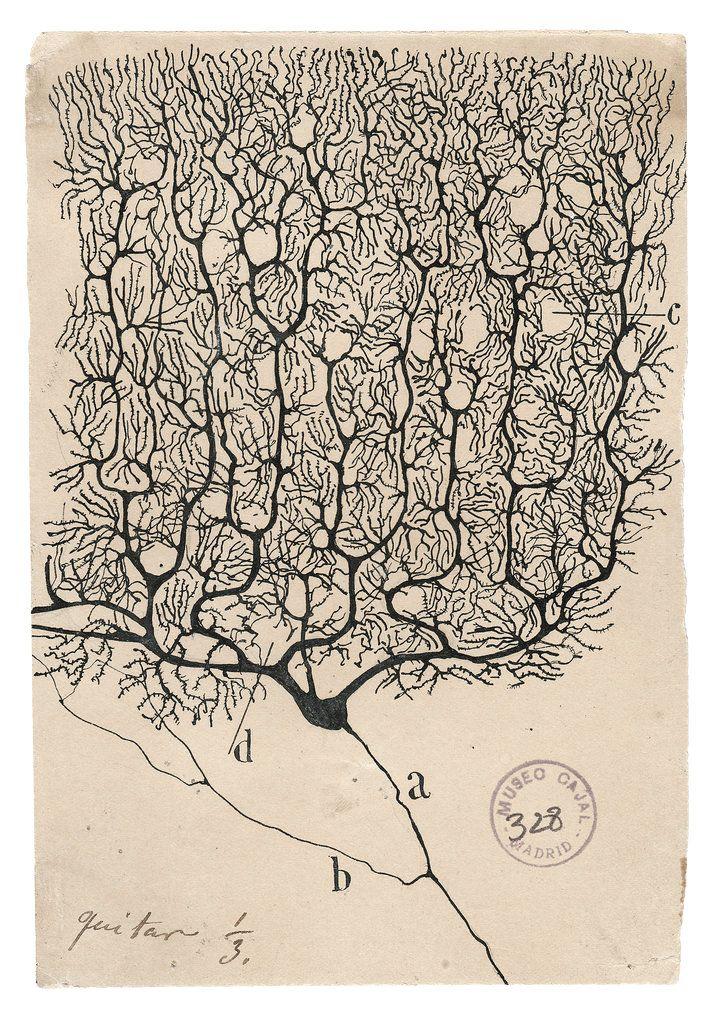
Una neurona tiene la maquinaria de cualquier célula eucariota (núcleo, mitocondrias, ribosomas) y además una forma rarísima. Del cuerpo celular, el soma, salen unas ramas cortas y muy ramificadas, las dendritas, que reciben señales de otras neuronas. Y sale un cable largo, el axón, que lleva la señal propia hacia afuera y termina en muchas puntas. Cada punta toca, casi, a otra célula: ese punto de contacto es la sinapsis. Las dendritas escuchan, el soma decide, el axón habla.
Que el sistema nervioso esté hecho de células separadas y no de una red continua no era obvio. A finales del siglo XIX Santiago Ramón y Cajal, mirando al microscopio tejido teñido con un método de Camillo Golgi, defendió que cada neurona es una unidad independiente y que la señal viaja en una sola dirección, de las dendritas al axón. Golgi pensaba distinto. Compartieron el Nobel en 1906, y el tiempo le dio la razón a Cajal, aunque hoy se sabe que también existen sinapsis eléctricas donde dos células sí quedan unidas por canales.
Una batería hecha de sal
Pon un electrodo finísimo dentro de una neurona quieta y otro afuera, y el voltímetro marca unos −70 milivoltios (según la neurona, entre −60 y −80). El interior es negativo. Es el potencial de reposo, y en el lenguaje de carga, campo y voltaje es exactamente lo que parece: una diferencia de energía por unidad de carga entre los dos lados de una membrana de cinco nanómetros.
¿De dónde sale? De que adentro y afuera hay sales distintas. Como se cuenta en la célula, la bomba de sodio y potasio saca sodio y mete potasio sin parar, pagando con ATP. El resultado es que adentro hay unas treinta veces más potasio que afuera y afuera unas diez veces más sodio que adentro. Esos gradientes son la batería. En reposo la membrana deja pasar sobre todo potasio, por unos canales que siempre están algo abiertos, y el potasio tiende a salir a favor de su concentración. Cada ion que sale se lleva una carga positiva y deja el interior un poco más negativo, hasta que la atracción eléctrica de vuelta equilibra el empuje de la concentración.
Ese balance tiene fórmula, la ecuación de Nernst. Para un ion de carga , el voltaje al que deja de haber flujo neto es
donde es la constante de los gases, la temperatura y la carga de un mol de electrones. A 37 °C, vale unos 27 mV. Con potasio a 5 milimolar afuera y 140 adentro sale mV; con sodio a 145 afuera y 12 adentro, mV. El reposo queda entre los dos, mucho más cerca del potasio porque es el ion que más pasa. Una precisión: la bomba también aporta un poco de negatividad directa, porque saca tres cargas por cada dos que mete, pero su papel principal no es ese. Su papel es mantener los gradientes. Si la apagas, el voltaje no cae de golpe; se va descargando a medida que las sales se mezclan.
Mantener la batería cargada sale caro. El cerebro es alrededor del 2 % del peso del cuerpo y en reposo gasta del orden del 20 % de su energía, buena parte en bombear iones. Es la lección de la termodinámica aplicada a una célula: un gradiente es un estado lejos del equilibrio, y lejos del equilibrio solo se está pagando.
La membrana es un condensador con fugas
Mira la membrana con ojos de electrónico. Una capa aislante delgadísima (la bicapa de lípidos) entre dos soluciones que conducen (el citoplasma y el líquido de afuera): eso es un condensador, y de los buenos, con cerca de un microfaradio por centímetro cuadrado. Los canales que siempre dejan pasar algo de corriente son una resistencia en paralelo. Y el potencial de reposo es una pila en serie con esa resistencia. El circuito completo, con una corriente que entra (por ejemplo, la que llega de las sinapsis), cumple las reglas de Kirchhoff:
Es la misma ecuación del circuito RC de la protoboard. La derivada del voltaje es proporcional a qué tan lejos está de donde quiere estar, que ahora es . Si la corriente es constante, el voltaje sube hacia ese valor con la curva exponencial de siempre: el 63 % del camino en un tiempo . En muchas neuronas esa constante de tiempo es de unos milisegundos a unas decenas de milisegundos. La membrana, entonces, integra: suma las entradas que le llegan, y las va olvidando con fugas.
Ahora agrega una sola regla, que no es de circuitos: si llega a un umbral , la neurona dispara, el voltaje vuelve a y durante un ratico, el periodo refractario, no puede volver a disparar. Ese es el modelo “integra y dispara con fugas”, una idea que se remonta a Louis Lapicque a comienzos del siglo XX y que todavía se usa porque es lo más simple que conserva lo esencial.
Inyecta una corriente constante en una membrana de juguete (R = 100 MΩ, C = 100 pF, τ = 10 ms). El voltaje sube como el de un condensador; si toca el umbral, la neurona dispara y vuelve a empezar. Son 200 ms de neurona dibujados en 4 s.
Con 200 pA la neurona dispara unas 63 veces por segundo. Cada disparo es igual a los demás: lo que crece con la entrada no es el tamaño de la espiga sino cuántas hay.
La membrana de juguete tiene 100 MΩ y 100 pF, o sea ms; reposo en −70 mV, umbral en −55 mV y 2 ms de periodo refractario. Con poca corriente, el voltaje se acomoda en y se queda ahí. Para tocar el umbral hace falta que ese punto de llegada lo supere, es decir, pA. Por debajo, no dispara jamás, por mucho que esperes. Por encima, el tiempo entre disparos sale de despejar la exponencial:
Con 200 pA sale una frecuencia de unos 63 disparos por segundo; con 300 pA, unos 112; con 500 pA, unos 180. La curva de abajo en la animación, la frecuencia como función de la corriente, es cero hasta el umbral y después crece, cada vez más despacio, sin pasar nunca de 500 Hz, que es lo que permite el periodo refractario. Fíjate en lo que eso significa: todos los disparos son iguales. La intensidad de la entrada no se codifica en el tamaño de la señal, sino en cuántas señales hay por segundo.
El disparo de verdad
El modelo de juguete hace trampa en un punto: el disparo es una regla que pusimos a mano. En una neurona real es un fenómeno físico, el potencial de acción, y entenderlo fue uno de los grandes logros de la biología del siglo XX. Lo resolvieron Alan Hodgkin y Andrew Huxley con el axón gigante del calamar: no un calamar gigante, sino un axón de calamar común que puede medir cerca de medio milímetro de grosor, lo bastante ancho para meterle un electrodo adentro. Con una técnica que fija el voltaje y mide la corriente que hace falta para sostenerlo, separaron la corriente de sodio de la de potasio, y en 1952 publicaron un modelo matemático que reproducía el potencial de acción. Recibieron el Nobel en 1963.
La historia que contaron es esta. En la membrana hay canales de sodio que se abren cuando el voltaje sube. Si una entrada empuja el voltaje hasta cerca de −55 mV, se abren algunos, entra sodio (que está mucho más concentrado afuera), el interior se vuelve menos negativo, eso abre más canales de sodio, entra más sodio… Es una retroalimentación positiva, y en menos de un milisegundo el voltaje se dispara hacia el , hasta unos +30 o +40 mV. Pero los canales de sodio se inactivan solos al poco tiempo, y mientras tanto se abren, más lentos, canales de potasio que dejan salir potasio y devuelven el voltaje hacia abajo, con un pequeño sobrepaso por debajo del reposo. Todo dura uno o dos milisegundos. Hodgkin y Huxley lo escribieron como un circuito con conductancias que dependen del voltaje y del tiempo:
donde , y son variables entre 0 y 1 que describen qué fracción de las “compuertas” de cada canal está abierta, cada una con su propia ecuación diferencial. Antes de que nadie viera un canal, las ecuaciones ya decían cómo se tenían que comportar.
Dos consecuencias. El potencial de acción es todo o nada: o la retroalimentación arranca y el pulso sale completo, o no arranca y no pasa nada, lo que lo emparenta con los unos y ceros de las compuertas lógicas (aunque el momento exacto de cada pulso sí es una cantidad continua que el cerebro usa). Y el pulso se regenera a lo largo del axón: cada tramo que dispara empuja al siguiente por encima del umbral, mientras el tramo de atrás está refractario y no puede reencenderse. Por eso la señal viaja en una sola dirección y llega al final del axón con el mismo tamaño con que salió, como una fila de fichas de dominó que se vuelve a parar sola.
Mielina: saltar en lugar de caminar
Esa regeneración tiene un costo: es lenta. En un cable de cobre la señal se propaga a una fracción grande de la velocidad de la luz, porque lo que viaja es el campo electromagnético. En un axón delgado y desnudo viaja a 1 o 2 metros por segundo, porque cada tramo tiene que cargar su condensador y abrir sus canales. Hay dos maneras de ir más rápido. Una es engordar el axón, que es lo que hizo el calamar. La otra es la que encontraron los vertebrados: envolver el axón en mielina, capas y capas de membrana de unas células de apoyo (las de Schwann en los nervios, los oligodendrocitos en el cerebro y la médula).
La mielina es aislante: sube la resistencia de la membrana y baja su capacitancia, así que hay que mover mucha menos carga para cambiar el voltaje. Entre tramo y tramo de mielina quedan unos huecos, los nodos de Ranvier, donde se concentran los canales. El potencial de acción se regenera solo en los nodos, y entre uno y otro la señal pasa de forma pasiva y casi instantánea: salta. En los axones mielinizados más gruesos la conducción llega a unos 100 metros por segundo. Un metro de la médula al pie, en una centésima de segundo: esa es la cuenta del principio. Y cuando la mielina se daña, como en la esclerosis múltiple, donde el sistema inmune ataca la mielina del cerebro y la médula, las señales se vuelven lentas o se pierden.
La sinapsis: electricidad, química, electricidad
Al final del axón, la mayoría de las neuronas no tocan a la siguiente. Queda un espacio de unos veinte nanómetros, la hendidura sináptica, y la señal lo cruza convertida en química. Cuando el potencial de acción llega a la terminal, se abren canales de calcio; el calcio que entra hace que unas vesículas llenas de neurotransmisor se fusionen con la membrana y suelten su contenido. Las moléculas cruzan por difusión, se pegan a receptores en la célula de enfrente y abren canales allí. Todo el paso toma del orden de un milisegundo.
Lo que pase después depende del neurotransmisor y del receptor. El glutamato, el principal excitador del cerebro, abre canales que dejan entrar cargas positivas y empujan a la siguiente neurona hacia su umbral. El GABA, el principal inhibidor, abre canales que la alejan de él. La acetilcolina es la que le habla al músculo en la placa neuromuscular. Otros, como la dopamina o la serotonina, actúan más como moduladores: no tanto pasan un mensaje puntual como ajustan cómo responden circuitos enteros. Y cada neurona recibe miles de estas entradas, unas que suman y otras que restan, que su membrana integra en el tiempo y en el espacio. Es el “integra y dispara” de la animación, con miles de corrientes en lugar de una.
Lo más importante de la sinapsis es que no es fija. Su fuerza cambia con el uso: se refuerza o se debilita según la actividad de las dos células que conecta. A finales de los años cuarenta Donald Hebb propuso que las conexiones entre neuronas que se activan juntas se fortalecen, y desde entonces se han medido muchos mecanismos de ese tipo. Es la mejor candidata que tenemos para lo que llamamos aprender y recordar.
Ochenta y seis mil millones
¿Cuántas neuronas tiene un cerebro humano? Durante décadas se repitió “cien mil millones” sin que nadie supiera bien de dónde salía. En 2009, el grupo de Suzana Herculano-Houzel disolvió cerebros donados hasta dejar una sopa homogénea de núcleos celulares, contó en muestras y extrapoló: unos 86 mil millones de neuronas, con un margen de error de varios miles de millones, y una cantidad comparable (no diez veces mayor, como también se repetía) de células gliales. Una sorpresa: la gran mayoría de esas neuronas, unas ocho de cada diez, están en el cerebelo, no en la corteza. Las sinapsis se estiman del orden de cien billones. Son estimaciones, no conteos, y conviene decirlo así.
La retina es un buen lugar para ver lo que hacen tantas neuronas juntas: es tejido del cerebro que se quedó en el ojo, y antes de mandar nada ya comprimió la imagen en contrastes. El cerebro entero sigue con esa lógica de capas que combinan y transforman, consumiendo más o menos lo que un bombillo pequeño, unos 20 vatios.
Inspiración, no copia
Mira otra vez la curva de frecuencia contra corriente de la animación: cero hasta el umbral, y después una subida. Recuerda a la función de activación de una neurona artificial, sobre todo a la ReLU, que vale cero para entradas negativas y crece para las positivas. No es casualidad: una neurona artificial se puede leer como un modelo muy simplificado de tasa de disparo. Recibe números, los pondera con pesos (las sinapsis), los suma (la membrana) y devuelve otro número (cuántos disparos por segundo). La idea de McCulloch y Pitts, en los años cuarenta, salió de mirar neuronas como estas.
Pero hay que ser honestos con lo que se perdió por el camino. Las neuronas reales hablan con pulsos y el momento de cada pulso importa; las artificiales, en su mayoría, con números continuos. Las dendritas reales no solo suman: hacen cálculos no lineales por su cuenta. Hay neuromoduladores que cambian las reglas de circuitos enteros, y hormonas que cambian el estado del cuerpo, que es el tema de hormonas y homeostasis. Y las redes artificiales aprenden con retropropagación, un algoritmo que necesita mandar información precisa hacia atrás por toda la red; si el cerebro hace algo equivalente, y cómo, es una pregunta abierta. Las redes artificiales tomaron del cerebro una inspiración, la de muchas unidades simples conectadas con pesos que se ajustan, y después se fueron por su propio camino. Que funcionen tan bien sin parecerse más dice algo sobre las funciones que se pueden aproximar sumando piezas simples. Que el cerebro haga lo que hace con 20 vatios dice que todavía nos falta entender mucho.